



Порядок наядовые (Najadales) (Н. Н. Цвелев)
Семейство апоногетоновые (Aponogetonaceae)
Среди водных растений тропиков Старого Света заметное место принадлежит видам апоногетона (Aponogeton, табл. 1, 1) - единственного рода семейства апоногетоновых, естественный ареал которого включает Африку к югу от Сахары, Южную Азию и Северную Австралию.
В роде апоногетон около 45 видов. Особенно много видов этого рода на Мадагаскаре - здесь встречаются 11 видов, эндемичных для этого острова и близлежащих Коморских островов. В ископаемом состоянии (олигоцен - около 25 млн. лет назад) отпечатки листьев одного из видов этого рода были найдены далеко за пределами тропиков - в Западном Казахстане (С. Г. Жилин, 1974).
По внешнему облику виды апоногетона напоминают обычные в наших водоемах рдесты (Potamogeton), однако уже в отношении жизненной формы имеются существенные отличия: все виды апоногетона - розеткообразующие растения с выходящими из пазух листьев розетки безлистными цветоносами и клубневидно утолщенным симподиальным корневищем, от которого отходят многочисленные тонкие корни.
Листья апоногетона обычно отчетливо разделены на короткое влагалище, черешок и цельнокрайнюю пластинку, форма которой варьирует от линейной до яйцевидной, но чаще всего бывает эллиптической или ланцетной. Вполне сидячие линейно-ланцетные листья имеет африканский апоногетон валлиснериевидный (A. vallisnerioides), а у африканского апоногетона ситникового (A. junceus) листовая пластинка редуцирована до средней жилки, в которую непосредственно переходит черешок. У многих видов или только погруженные, или только плавающие листья (последние обычно с более широкими и менее прозрачными пластинками), но не так уж редко и те и другие есть в пределах одного и того же вида и на одном и том же растении. Обычно листовые пластинки имеют утолщенную среднюю жилку и несколько дополнительных дуговидных жилок, соединенных друг с другом и со средней жилкой сетью поперечных анастомозов. Замечательны листья у разводимого в аквариумах апоногетона мадагаскарского (A. madagascariensis), более известного под названием апоногетона продырявленного (A. fenestralis), а также "растения-сетки" или "растения-кружева" (рис. 9, 1). Его листовые пластинки уже в самом начале своего развития теряют ткань между жилками, действительно становясь похожими на мелкоячеистую сеть или кружево. Эта особенность в какой-то степени предохраняет листовую пластинку от повреждений при обитании в быстро текущих ручьях и речках.
Колосовидные соцветия апоногетоновых располагаются на длинных ножках, выносящих их над поверхностью воды. У многих видов соцветия - простые колосья со спирально расположенными на довольно толстой оси цветками, у других они от основания делятся на 2, реже 3-10 ветвей, причем в этом случае цветки часто располагаются лишь на одной стороне каждой из ветвей (рис. 9, 3). У основания соцветия имеется окутывающее его покрывало, обычно быстро опадающее после того, как соцветие выходит из воды.
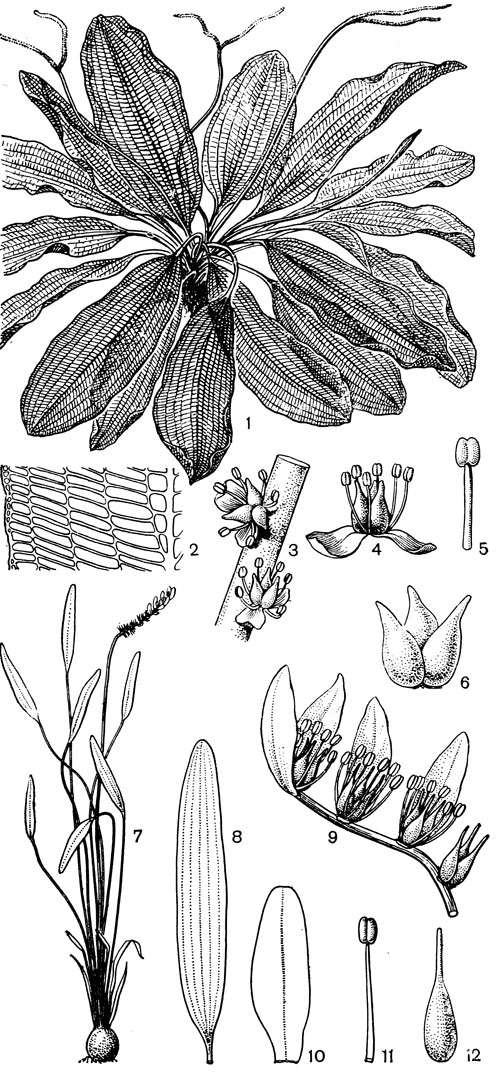
Рис. 9. Апоногетоновые. Апоногетон мадагаскарский (Aponogeton madagascariensis): 1 - общий вид; 2 - часть листовой пластинки; 3 - часть соцветия; 4 - цветок; 5 - тычинка; 6 - плод. Апоногетон изящный (A. gracilis): 7 - общий вид; 8 - листовая пластинка; 9 - часть соцветия; 10 - листочек околоцветника; 11 - тычинка; 12 - листовка
Цветки апоногетоновых обычно обоеполые, реже однополые, зигоморфные или актиноморфные, первично 3-членные, без прицветников. Сегменты околоцветника все одинакового строения, чаще всего их 2, реже 3 (тогда третий меньше двух других), 1 или они вообще отсутствуют. У многих видов сегменты околоцветника лепестковидные и окрашенные в белый, розовый или желтый цвет, но остающиеся при плодах и зеленеющие, у других они с самого начала больше похожи на прицветники. У апоногетона двуколосого (A. distachyon) и некоторых других видов единственный сегмент околоцветника сильно увеличен (рис. 10,4). Тычинок обычно 6, расположенных в 2 круга, с довольно длинными нитями и мелкими двугнездными пыльниками, реже (иногда в пределах одного и того же растения) число тычинок достигает 12, и тогда они расположены в 3-4 круга. Пыльцевые зерна однобороздные. Гинецей состоит обычно из 3, реже 2-9 почти свободных сидячих плодолистиков, с 2-8 семязачатками в каждом плодолистике. Каждый плодолистик на верхушке оттянут в короткий столбик, несущий низбегающее рыльце в виде продольной бороздки на внутренней стороне (рис. 9, 6, 12).
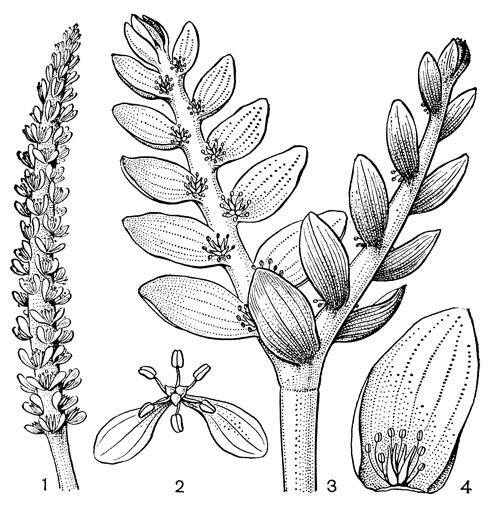
Рис. 10. Соцветия и цветки апоногетоновых. Апоногетон волнистый (Aponogeton undulatus): 1 - соцветие; 2 - цветок. Апоногетон двуколосый (A. distachyon): 3 - соцветие; 4 - цветок
Формирующийся из гинецея плод - многолистовка погружается в воду, где околоплодник постепенно разрушается, освобождая лишенные эндосперма семена, которые сразу падают на дно или некоторое время (до нескольких часов) плавают на поверхности. Прорастание семян происходит довольно быстро: от одного дня до нескольких недель.
В экологическом отношении некоторые виды апоногетона не имеют узкой приуроченности, другие, напротив, обитают или только в быстро текущих речках и ручьях, или только в стоячих водоемах. Есть виды, например австралийский апоногетон шестилисточковый (A. hexapetalus), растущие в водоемах, существующих только 3-4 месяца в году, а затем сильно пересыхающих. При обитании в относительно глубоких водоемах соцветия могут не достигать поверхности воды и оставаться заключенными в покрывало. В этом случае одни виды, например австралийский апоногетон пузырчатый (A. bullosus), не образуют плодов, другие, например апоногетон мадагаскарский, опыляются клейстогамно, образуя более мелкие плоды с небольшим количеством семян.
Способ перекрестного опыления у видов апоногетона еще недостаточно изучен. Присутствие септальных нектарников между плодолистиками и часто довольно яркая окраска цветков, собранных в соцветия, свидетельствуют в пользу энтомофилии, хотя возможность опыления цветков ветром не может считаться исключенной. Возможно также опыление полупогруженных в воду соцветий пыльцой, высыпавшейся на поверхность воды. Самоопыление обычно исключается за счет протандрии (рыльца становятся восприимчивы к пыльце лишь после высыпания ее из пыльников того же цветка), а у апоногетонов Трупина (A. troupinii) и двудомного (A. dioecus) - за счет перехода к двудомности. У некоторых видов однополые цветки встречаются и в пределах одного и того же соцветия. Так, у апоногетона Лopии (A. loriae) нижние цветки в соцветии обоеполые, а верхние мужские - с рудиментами плодолистиков, у апоногетона голоцветкового (A. nudiflorus) нижние цветки соцветия женские, не имеющие околоцветника. Южноафриканский апоногетон Ремана (A. rehmannii) - апомиктический вид, в его соцветиях имеются только женские цветки, а у апоногетона волнистого (A. undnlatns) из Индии обычна вивипария: соцветия видоизменяются в молодые растения, которые опускаются на дно и укореняются.
Во всех тропических странах, где встречаются виды семейства апоногетоновых, местные жители употребляют в пищу в печеном или вареном виде их богатые крахмалом клубнеобразные корневища. Кроме того, многие виды апоногетона культивируют в качестве аквариумных растений. Среди них особенно популярен южноафриканский апоногетон двуколосый, введенный в культуру уже с 1780 г. и натурализовавшийся во многих водоемах Западной Европы, Австралии и Южной Америки. Несколько реже встречаются в культуре апоногетон волнистый, апоногетон пузырчатый из Австралии, мадагаскарский апоногетон улъвовидный (A. ulvaceus) и апоногетон мадагаскарский. Последний вид, замечательный своими сетчатыми листьями, культивируют уже более 100 лет, однако в аквариумах он живет недолго и очень требователен к температурным условиям.
Семейство шейхцериевые (Scheuchzeriaceae)
Единственный род семейства шейхцериевых - шейхцерия (Scheuchzeria) - представлен всего двумя очень близкими видами, часто принимаемыми за европейский и североамериканский подвиды одного вида - шейхцерии болотной (S. palustris), широко распространенной в холодных и умеренно теплых областях северного полушария. У южной границы своего ареала шейхцерия известна лишь из немногих изолированных местонахождений, обычно в горных районах (Пиренеи, Альпы, Карпаты, Северные Кордильеры), но также и на равнинах. Например, в Харьковской и Воронежской областях СССР она встречается на реликтовых сфагновых болотах песчаных надлуговых террас, в речных долинах вместе с многими другими северными видами (пушицей, росянкой, клюквой и др.).
Шейхцерия болотная (рис. 11, 2, 2) - небольшое (всего до 20 см высотой) многолетнее болотное растение с длинными (до 0,5 м), часто разветвленными симподиальными корневищами, которые играют заметную роль в закреплении сфагнового покрова на болотах, особенно так называемых сфагновых мочажин. В цветущем состоянии шейхцерия малозаметна, так как ее кистевидные соцветия с невзрачными цветками лишь едва возвышаются над сфагновым мхом, а линейные, очередные, двурядно расположенные на коротком стебле листья можно принять за листья какого-либо представителя осоковых или злаков. У основания листьев имеются довольно длинные открытые влагалища, отделенные от пластинки поперечным перепончатым выростом - язычком, а немного ниже верхушки листа на его верхней стороне хорошо заметна почти округлая ямка - водяная пора, служащая, подобно гидатодам, для выделения избыточной воды. В пазухах листьев шейхцерии расположены многоклеточные волоски, гомологичные внутривлагалищным чешуйкам многих других водных и болотных однодольных. Во всех вегетативных органах много воздухоносной ткани, позволяющей побегам шейхцерии возвышаться над поверхностью воды.
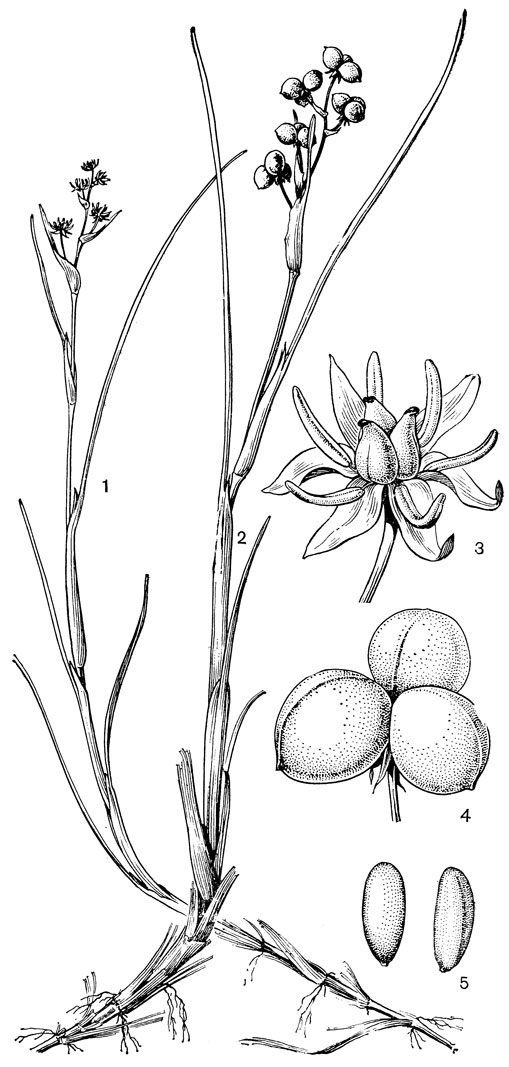
Рис. 11. Шейхцерия болотная (Scheuchzeria palustris): 1 - общий вид цветущего растения; 2 - общий вид плодоносящего растения; 3 - цветок; 4 - плод; 5 - семя
Заканчивающие собой облиственные репродуктивные побеги, кистевидные соцветия шейхцерии обычно состоят всего из 3-6(10) обоеполых актиноморфных цветков, расположенных на коротких ножках в пазухах прицветников. Околоцветник представлен 6 небольшими желтовато- или буровато-зелеными сегментами, расположенными в два 3-членных круга. Также расположенные двумя 3-членными кругами тычинки заметно выше околоцветника и состоят из довольно крупных красно-бурых пыльников на сильно удлиняющихся к концу цветения нитях. Связник пыльников вытянут на верхушке в заостренный надсвязник. Пыльцевые зерна безапертурные. Гинецей составляют 3, реже 2 или 4-6 лишь едва сросшихся у основания, а при плодах свободных плодолистиков. Каждый плодолистик несет 2, реже больше анатропных семязачатка и несколько суживается к расположенному на его верхушке сидячему дисковидному рыльцу, покрытому довольно длинными сосочками. При плодах репродуктивные побеги шейхцерии становятся более заметными, так как несут относительно крупные желто-зеленые плоды - много листовки, части которых сильно вздуты и вскрываются щелью по швам плодолистиков.
Шейхцерия принадлежит к числу ветроопыляемых растений, причем возможность самоопыления уменьшается за счет протандрии - более раннего созревания пыльников по сравнению с рыльцами того же цветка. Широкоэллипсоидальные, довольно крупные семена распространяются главным образом гидрохорно, так как обладают хорошей плавучестью благодаря наличию воздухоносной ткани в оболочке. Кроме того, шейхцерия быстро размножается вегетативным путем, так как ветви корневища быстро теряют связь с материнским растением. Возможен также перенос водой во время половодья небольших частей сфагнового покрова болота вместе с корневищами шейхцерии и других болотных растений.
Семейство ситниковидные, или триостренниковые (Juncaginaceae)
Представители этого небольшого, включающего всего 5 родов и около 20 видов, семейства мало бросаются в глаза из-за своего невзрачного облика, но интересны как группа, переходная от относительно примитивных, энтомофильных семейств однодольных, подобных частуховым, к анемофильным и гидрофильным семействам высокоспециализированных водных растений (рдестовым, дзанникеллиевым и др.). Ареал этого семейства охватывает почти все внетропические области как в северном, так и в южном полушарии, а также горные районы тропиков. Почти по всему ареалу семейства распространен род триостренник (Triglochin) с 15 видами, из которых 2 встречаются и на территории СССР. Остальные роды имеют более ограниченные ареалы: цикногетон (Cycnogeton) и маундия (Maundia) - в Австралии и Тасмании, тетронциум (Tetroncium) - во внетропической части Южной Америки и лилея (Lilaea) - вдоль Тихоокеанского побережья Америки от Юго-Западной Канады до Чили включительно.
Большинство видов ситниковидных - розеткообразующие многолетники с коротким, реже более длинным и разветвленным корневищем, двурядно расположенными линейными (иногда щетиновидными) листьями и колосовидными или кистевидными соцветиями на длинных безлистных ножках. К однолетникам, также имеющим собранные в розетку листья и безлистные ножки соцветий, принадлежат несколько австралийских видов триостренника, в том числе триостренник капканный (Triglochin calcitraра, рис. 12, 4). Обычно высота однолетников не превышает 10 см, а триостренник мельчайший (Т. minutissimum) представляет собой карликовое растеньице высотой 1,5-3(4) см с щетиновидными листьями и соцветиями с 4-11 цветками. Плоские, реже полуцилиндрические листья ситниковидных у основания расширены и образуют свободные (не сросшиеся краями) влагалища, а в месте перехода их в пластинки имеется поперечный перепончатый вырост - язычок. В пазухах листьев заметны характерные для многих болотных и водных однодольных внутривлагалищные чешуйки с выделяющими слизь железками.
Соцветия всегда заканчивают собой укороченные побеги с розетками листьев и не имеют у основания предлистьев. Прицветники в соцветии также отсутствуют. Цветки у разных родов семейства довольно сильно различаются по строению. У триостренника и цикногетона они обоеполые, актиноморфные и 3-членные. Очень мелкие и расположенные двумя кругами 6 сегментов околоцветника имеют оригинальное строение: с внутренней (верхней) стороны они сильно вогнуты и напоминают створку раковины. В каждом таком сегменте располагается почти сидячий двугнездный пыльник, прикрепленный к основанию листочка. Таким образом, тычинки располагаются здесь двумя кругами, но, в отличие от близкого семейства шейхцериевых, не чередуются с сегментами околоцветника, а противостоят им, что позволило некоторым авторам принимать сегменты околоцветника у ситниковидных за прицветники (брактеи), а весь цветок - за соцветие из нескольких однополых цветков. Шаровидные пыльцевые зерна имеют гладкую оболочку, как и у представителей многих других анемофильных семейств и родов.
Гинецей у видов триостренника состоит из 6 расположенных мутовчато плодолистиков, которые обычно полностью срастаются друг с другом своей брюшной (вентральной) частью. Лишь у триостренника заостренного (Т. mucronatum) верхушки плодолистиков остаются свободными и переходят в острие. Существенное различие имеется в числе развитых плодолистиков: у широко распространенного триостренника морского (Т. maritimum) все 6 плодолистиков развиты и несут по одному анатропному семязачатку, а у остальных видов этого рода 3 вполне развитых плодолистика чередуются с 3 стерильными и более или менее редуцированными. У представителей близкого к триостреннику рода цикногетон все 6 плодолистиков одинаково развитые и до основания свободные. У обоих родов плодолистики в верхней части более или менее оттянуты и заканчиваются длиннососочковыми рыльцами, сливающимися у видов с полностью сросшимися плодолистиками в одно дисковидное рыльце.
У очень обособленного и даже выделявшегося некоторыми авторами в особое семейство австралийского рода маундия число сегментов околоцветника варьирует от 2 до 4, вследствие чего цветки становятся более или менее зигоморфными. Тычинок у маундии обычно 6, с сидячими пыльниками. Этот род отличается от триостренника и по положению семязачатка в плодолистике: он здесь висячий и ортотропный.
Тетронциум магелланский (Tetroncium magellanicum, рис. 12, 7-10), в отличие от других представителей семейства, имеет не только однополые, но и двудомные цветки. Как соцветия, так и цветки мужских особей очень сходны по строению с соцветиями и цветками рдестовых (ср. рис. 13 и 14). Они также имеют 4 сегмента околоцветника и 4 тычинки с сидячими пыльниками, прикрепленными к основанию сегментов. Женские цветки в соцветиях женских особей обращены вниз и состоят из 4 сегментов околоцветника и 4 рогообразных, близ верхушки свободных плодолистиков.
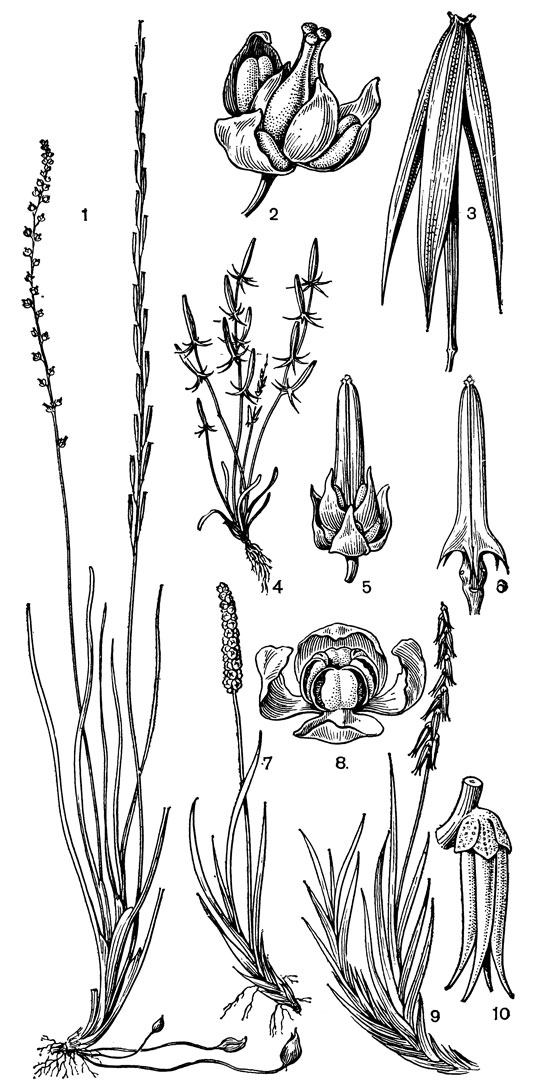
Рис. 12. Ситниковидные. Триостренник болотный (Triglochin palustre) 1 - общий вид; 2 - цветок; 3 - зрелый плод. Триострен ник капканный (Т. calcitrapa): 4 - общий вид; 5 - цветок; 6 - незрелый плод. Тетронциум магелланский (Tetroncium magellanicum): 7 - цветущий побег мужского растения; 8 - мужской цветок; 9 - цветущий побег женского растения; 10 - женский цветок
Еще оригинальнее цветки представителей американского рода лилеи, выделявшегося многими авторами в самостоятельное семейство. Их колосовидные соцветия могут быть двух типов: одни - на довольно длинных цветоносах, выступающих из листовых влагалищ, несут только женские цветки без околоцветника, состоящие из одного плодолистика с одним семязачатком и относительно коротким столбиком; другие - отчасти скрытые во влагалищах листьев и состоящие из обоеполых цветков, кроме одного или немногих конечных мужских цветков. Каждый обоеполый цветок имеет один прицветникообразный сегмент околоцветника, который срастается с основанием единственной тычинки, и один плодолистик. Кроме того, у основания цветоносов, во влагалищах листьев обычно имеются еще 1-2 женских цветка, которые кажутся сидячими, но в действительности заканчивают собой самостоятельные, сильно укороченные пазушные ветви. Эти цветки лишены околоцветника, а их одноплодолистиковый гинецей имеет необычайно длинный, иногда до 14 см, прямой нитевидный столбик с булавовидным рыльцем. Такой длинный столбик, по-видимому, необходим для того, чтобы рыльце всегда возвышалось над поверхностью воды, так как лилея растет на болотах и в мелких водоемах.
Плод ситниковидных обычно состоит из свободных или сросшихся друг с другом, невскрывающихся, односемянных частей, число которых соответствует числу фертильных плодолистиков. У триостренника морского плод распадается на 6 частей, а у других видов этого рода плод, начиная снизу, распадается на 3 части, которые некоторое время остаются соединенными с центральным столбиком плода, образованным тремя стерильными плодолистиками. У наиболее широко распространенного вида триостренника болотного (Triglochin palustre, рис. 12, 3) 3 части зрелого плода заканчиваются внизу длинным острием - отсюда как русское, так и латинское название этого рода. У лилеи плод состоит только из одной односемянной части. Семена всех ситниковидных лишены эндосперма и имеют прямой зародыш.
Все ситниковидные - влаголюбивые растения, обычно растущие на болотах и болотистых лугах, по берегам водоемов. Мелкие однолетние виды триостренника нередко обильно разрастаются на приречных отмелях и на месте пересохших водоемов. Уже маундия и лилея могут расти на дне мелководных водоемов, а австралийский цикногетон высокий (Cycnogeton procerus) - настоящее водное растение, обитающее в довольно глубоких водоемах, хотя его соцветия всегда возвышаются над водой. Высота его обычной водной формы может достигать 1 м и более; однако на месте пересохших водоемов встречается и наземная форма этого вида, значительно меньших размеров и с более узкими листьями. Многие виды триостренника, в том числе триостренник морской, галофильны и встречаются как на внутриконтинентальных солончаках, так и на засоленных местах морских побережий. К галофильным растениям принадлежит и лилея, часто растущая по берегам соленых озер.
Цветки ситниковидных опыляются с помощью ветра, причем самоопылению обычно препятствует протогиния, а у тетронциума - двудомность цветков. У видов триостренника отмечается скена не только женской и мужской фаз в развитии цветка, но и двух мужских фаз: в первой из них вскрываются тычинки наружного круга, а во второй - внутреннего круга. Несмотря на отсутствие нектарников, цветки триостренника посещают мелкие насекомые (вероятно, ради пыльцы), которые могут принимать участие в их опылении.
Основным способом распространения диаспор - односемянных частей плода - у ситниковидных является гидрохория. У всех видов семейства части плодов обладают хорошей плавучестью и способны переноситься потоками воды на большие расстояния. Однако у многих видов существенное значение имеет и экзозоохория. Части плодов триостренника морского и других видов этого рода могут переноситься с комочками почвы на ногах животных и человека. У некоторых видов есть специальные приспособления для такого распространения. Так, у триостренника болотного обращенные в сторону и вниз длиннозаостренные части плода запутываются в шерсти зверей и перьях птиц при соприкосновении с ними, а у триостренника капканного на каждой части плода есть еще шипообразный вырост (рис. 12, 6).
Многолетним ситниковидным свойственно также вегетативное размножение с помощью корневищ и луковичек. У тетронциума ветви корневища теряют связь с материнским корневищем. Триостренник болотный осенью образует в пазухах нижних листьев тонкие горизонтальные подземные побеги до 10 (15) см длиной, несущие на верхушке луковицеобразную зимующую почку, состоящую из немногих видоизмененных листьев. Материнское растение за зиму обычно отмирает, а из ставших самостоятельными луковичек образуются новые особи. Близкий вид - триостренник луковичный (Triglochin bulbosum) также образует луковички, но не на длинных столонах, а у основания материнского растения.
Водный цикногетон высокий образует довольно крупные клубни, употребляемые в пищу местным населением. Триостренник морской - хорошее пастбищное кормовое растение; кроме того, его вегетативные побеги можно использовать в пищу в качестве салата, но только после ошпаривания кипятком, уничтожающим не очень приятный запах, свойственный всем видам триостренника.
Семейство рдестовые (Potamogetonaceae)
К семейству рдестовых, включающему 2 рода, принадлежат многие обычные по всей территории СССР водные растения разнообразного облика с возвышающимися над поверхностью воды, реже плавающими колосовидными соцветиями. Содержащий около 100 видов род рдест (Potamogeton, рис. 13 и 14) распространен в пресных, реже солоноватых водоемах обоих полушарий, но преимущественно вне тропиков, а нередко присоединяемый к нему род гренландия (Groenlandia) представлен всего одним видом - гренландией густолистной (G. densa, рис. 13, 6-9), известной лишь из относительно немногих местонахождений в Евразии и Северной Африке.
Рдестовые начинают свое развитие, закрепляясь на дне водоемов с помощью более или менее длинных симподиальных корневищ, от узлов которых отходят простые, реже разветвленные корни с длинными корневыми волосками. Обычно они остаются прикрепленными к грунту, но отдельные побеги и части побегов могут отделяться от родительской особи и свободно плавать в воде, продолжая свое развитие. Рдестовые - многолетние растения. В оптимальных условиях, например в тропиках и субтропиках, они вегетируют в течение всего года, а во внетропических областях, где водоемы нередко замерзают и даже промерзают до дна, они перезимовывают с помощью корневищ и нижних частей побегов или за счет образующихся в пазухах листьев и на верхушках стеблей зимующих почек - сильно укороченных вегетативных побегов с тесно сближенными мелкими листьями и нередко утолщенной осью.
В отличие от преимущественно тропического семейства апоногетоновых, представители которого внешне похожи на рдестовых, последние всегда имеют удлиненные, часто сильно разветвленные стебли с расставленными, а не сближенными в прикорневую розетку листьями. У рдестов почти все листья расположены очередно за исключением двух почти супротивных листьев в местах отхождения соцветий, а у Гренландии все листья попарно (иногда по 3) сближены, располагаясь почти супротивно. Стебли рдестовых обычно цилиндрические, однако у рдеста сплюснутого (Potamogeton compressus) и родственных ему видов они сильно сплюснутые с боков и лентовидно расширенные, почти не отличающиеся по ширине от его линейных листьев.
По строению расположенных у основания листьев прилистниковидных придатков, обычно принимаемых за прилистники, все рдестовые можно разделить на три очень неодинаковые по объему группы. К первой принадлежит значительное большинство рдестов, составляющих подрод рдест (Potamogeton); у них прилистники срастаются друг с другом, образуя охватывающий стебель футляр, расположенный в пазухе листа и расщепленный с противоположной ему стороны. У видов этой группы листья не имеют влагалищ. Вторую группу образуют относительно немногочисленные виды рдестов из подрода колеогетон (Coleogeton), в том числе широко распространенный в СССР рдест гребенчатый (Potamogeton pectinatus). У этих видов прилистники почти по всей своей длине прирастают к нижней части листьев, образуя довольно длинные трубкообразные влагалища, которые могут быть расщепленными со стороны, противоположной листу (у рдеста гребенчатого), или замкнутыми (у рдеста нитевидного - P. filiformis). Существуют немногие переходные между обеими группами виды с короткими влагалищами листьев, к ним принадлежат дальневосточный рдест Маака (Р. maackianus) и североамериканский рдест Роббинса (P. robbinsii), у которого верхние свободные части прилистников выступают над основанием листовой пластинки в виде двух длинных и острых зубцов. К третьей группе принадлежит только род Гренландия, у представителей которого два почти свободных прилистника имеют лишь листья, расположенные у выхода ножек соцветия, а остальные листья вообще лишены прилистников. Кроме прилистников, в пазухах листьев большинства рдестов расположены еще очень мелкие внутривлагалищные чешуйки с выделяющими слизь железками.
Форма листьев у рдестовых очень изменчива. У большинства видов сидячие листья, от узколинейных, почти нитевидных (у рдеста волосовидного - P. trichoides, или рдеста нитевидного) до штирокоэллиптических (у рдеста блестящего - P. lucens, рис. 13, 1) или широкояйцевидных со стеблеобъемлющим основанием (у рдеста пронзеннолистного - P. perfoliatus, рис. 13, 3). Длинные черешки имеются у листьев с плавающими на поверхности воды эллиптическими или ланцетными пластинками. Наиболее широко распространенный вид с такими листьями - рдест плавающий (P. natans, рис. 14, 2), у которого многочисленные плавающие листья и относительно немногие подводные листья с очень узкими, иногда почти полностью редуцированными пластинками. Более широкие подводные листья при также всегда имеющихся плавающих листьях у близкого вида рдеста узловатого (P. nodosus); у рдеста злаковидного (P. gramineus, рис. 14, 7) листья уже преимущественно подводные, ланцетные, с очень короткими черешками, а плавающие листья с эллиптическими пластинками и длинными черешками часто вообще отсутствуют. У рдеста альпийского (P. alpinus, рис. 14, 9) плавающие короткочерешковые листья уже мало отличаются от подводных и также могут отсутствовать. Многие рдестовые имеют цельнокрайние листья, но не так уж редки и виды с зубчатыми по краю листьями, а у широко распространенного в СССР рдеста курчавого (P. crispus) листья по краю обычно курчавоволнистые. Жилкование листьев у рдестовых дуговидное или параллельное, причем у узколистных видов с линейными пластинками количество жилок имеет большое систематическое значение.
Колосовидные соцветия рдестовых расположены на безлистных ножках, выходящих из верхушек побегов или из пазухи одного из двух почти супротивно сближенных листьев.