



Порядок имбирные (Zingiberales) (С. С. Морщихина)
Семейство стрелитциевые (Strelitziaceae)
Стрелитциевые объединяют всего 3 рода и 7 видов и имеют удивительным образом разорванный ареал. Знаменитое "дерево путешественников" - равенала мадагаскарская (Ravenala madagascariensis, рис. 217, 1-4) представляет монотипный род, эндемичный для Мадагаскара. Один вид рода фенакоспермум (Phenakospermum, рис. 217, 5-7) произрастает в тропических дождевых лесах Южной Америки. В восточной части Южной Африки распространено 5 видов стрелитции (Strelitzia, рис.. 218, табл. 46, 1, 2). В семействе преобладают древовидные растения с высоким древеснеющим стволом (но без вторичного роста) и двурядно расположенными листьями. До высоты 15 м поднимаются мощные стволы равеналы, увенчанные гигантским веером из 20-30 листьев. Фенакоспермум, по облику похожий на равеналу, имеет не столь высокий ствол, лишь до 9 м. Стрелитция Николая (S. nicolai, табл. 46, 1) вырастает до 5 м, у других видов стволы намного меньше, а у стрелитции королевской (S. rеginae, рис. 218, табл. 46, 2) стебель совсем укорочен и только листья поднимаются над поверхностью земли.
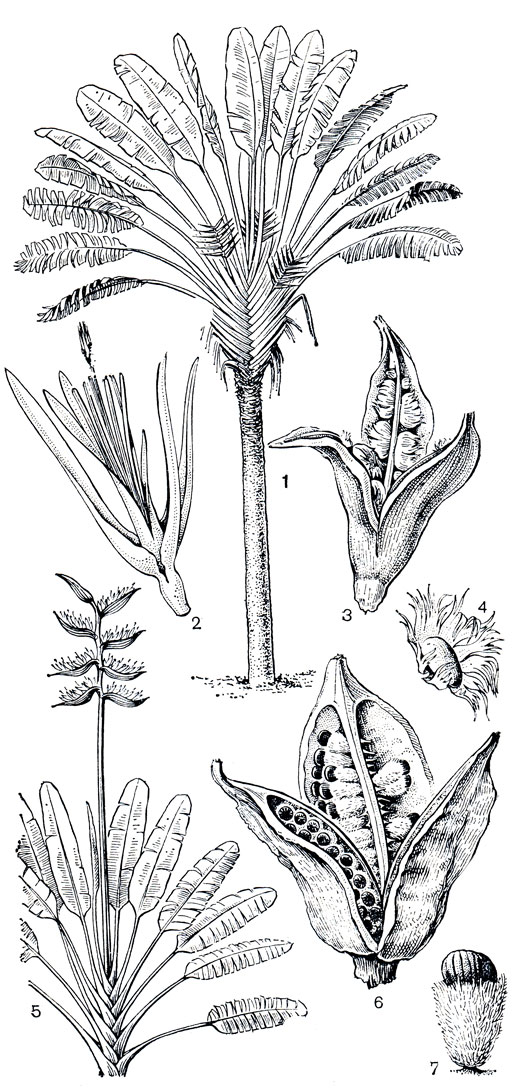
Рис. 217. Стрелитциевые. Равенала мадагаскарская (Ravenala madagascariensis): 1 - цветущее растение; 2 - цветок; 3 - открывшийся плод; 4 - семя с ариллусом. Фенакоспермум гвианский (Phenakospermum guianense): 5 - цветущее растение; 6 - открывшийся плод; 7 - семя с ариллусом
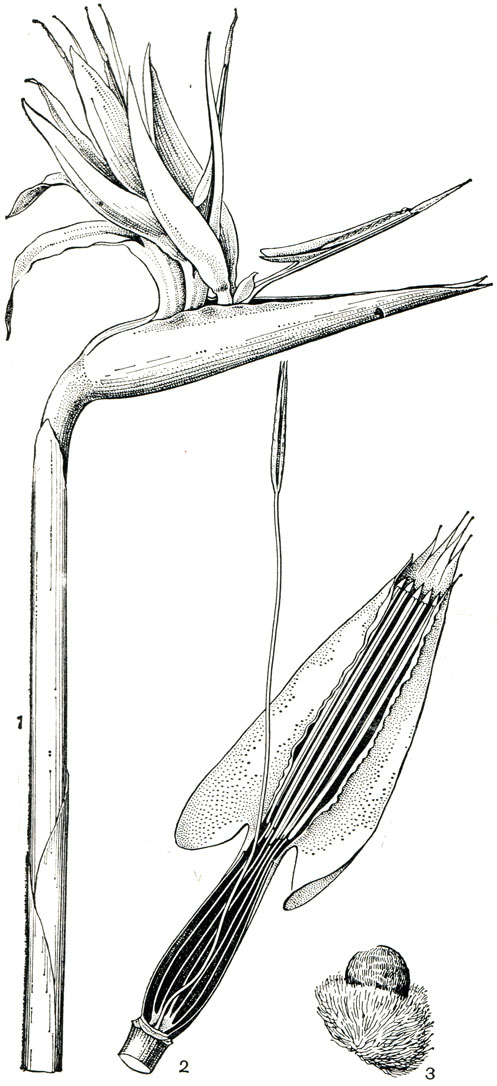
Рис. 218. Стрелитция королевская (Strelitzia reginae): 1 - соцветие; 2 - стреловидный орган из лепестков раскрыт, столбик поднят, видны 5 тычинок; 3 - семя с ариллусом
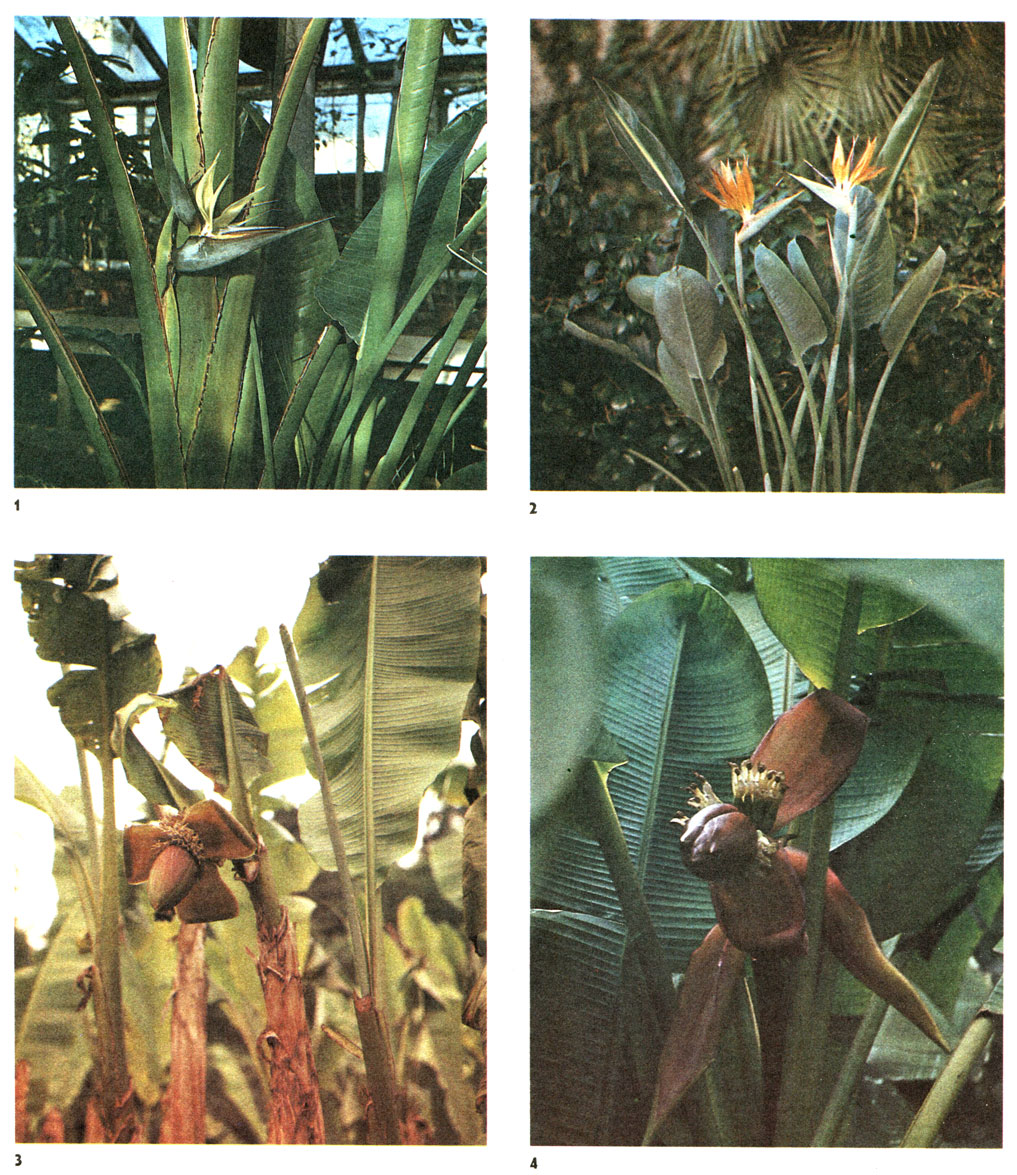
Таблица 46. Стрелитциевые и банановые: 1 - стрелитция Николая (Strelitzia nicolai), оранжереи Ботанического института АН СССР в Ленинграде; 2 - стрелитция королевская (S. reginae), оранжереи фирмы "Цветы" в Ленинграде; 3 - банан японский (Musa basjoo), Батумский ботанический сад; 4 - банан текстильный (М. textilis), о. Маврикий, ботанический сад
У самого основания стволов стрелитциевые образуют отпрыски, лишь у фенакоспермума горизонтальные симподиальные корневища, покрытые чешуевидными листьями, растут под землей и уже на некотором расстоянии от материнского ствола развивают новые стебли. Листья стрелитциевых с длинными черешками, имеющими влагалища, и овальными или удлиненными пластинками. По сторонам от крупной главной жилки - многочисленные, слегка изогнутые, почти параллельные боковые жилки, по которым крупные листья разрываются от ветра; целыми их можно увидеть лишь у экземпляров, выращенных в оранжереях. У равеналы длинные влагалища с сомкнутыми краями наполнены выделенной тканями жидкостью, значение которой в жизни растения пока неясно. В этой жидкости кишат микроорганизмы, личинки насекомых и даже мелкие земноводные, что делает эту воду абсолютно непригодной в качестве питья для усталых путешественников вопреки распространенной версии, породившей бытующее название растения.
Каждый новый лист у стрелитциевых развивается под защитой влагалища предыдущего листа, он трубчато свернут, и наружная его половина, стесненная влагалищем, остается уже внутренней, так что весь лист несколько асимметричен. В клетках листьев многочисленные включения кремнезема и кристаллы оксалата кальция. Проводящая система стволов равеналы лишена сосудов, они имеются лишь в ее корнях, а у фенакоспермума и стрелитции и в корнях, и в стеблях есть сосуды с лестничной перфорацией.
Соцветия образуются обычно в пазухах листьев, только фенакоспермум имеет верхушечное соцветие. На главной оси соцветия двурядно расположены крупные кожистые кроющие листья. Они продольно сложены, словно ножны, и заключают в себе парциальные соцветия - завитки, в которых цветки обращены лишь к верхней стороне. Цветение начинается с нижних завитков и в каждом из них также от основания парциального соцветия. Соцветия равеналы длиной более 1,5 м несут по 10-12 пар-циальных соцветий; ее огромные, длиной около 50 см, кроющие листья по форме напоминают ладью и содержат 10-15 последовательно открывающихся цветков.
Цветки стрелитциевых снабжены прицветничком, обоеполые, у равеналы и фенакоспермума со слабо выраженной зигоморфией, а у стрелитции - зигоморфные. Сегменты околоцветника располагаются по 3 в 2 круга. У равеналы и фенакоспермума все они лепестковидные, белые, почти одинакового размера; лишь один сегмент внутреннего круга, обращенный к главной оси соцветия, несколько уже и короче остальных. В цветках стрелитции форма, окраска и функции сегментов наружного и внутреннего кругов значительно дифференцированы. Тычинки с 2-гнездными линейными пыльниками имеют упругие и прочные нити. Цветки равеналы содержат 6 тычинок, а у представителей других родов их только 5, не развитой остается тычинка у медианного лепестка, обращенного к главной оси соцветия. Цветки стрелитциевых протандричны. Для них характерен так называемый "механизм взрыва", когда зажатые лепестками тычинки мгновенно освобождаются опылителем и выбрасывают пыльцу. Пыльцевые зерна стрелитциевых крупные, с безапертурной оболочкой, слипаются хлопьями благодаря нитевидным образованиям, окружающим их в пыльнике. Гинецей стрелитциевых синкарпный, из трех плодолистиков, завязь 3-гнездная, нижняя, с многочисленными анатропными семязачатками; столбик обычно с 3-лопастным рыльцем. В цветках равеналы лопасти рыльца короткие, а у стрелитции - длинные, немного неравные, с волнистой воспринимающей поверхностью, обращенной кверху. В тканях верхней части завязи расположены септальные желёзки, открывающиеся у основания столбика. Нектар наполняет всю ладью кроющего листа и вытекает за его края. Цветки стрелитциевых не имеют заметного запаха, но яркой окраской и обилием нектара привлекают птиц.
Английский ботаник Дж. Ф. С. Эллиот (1890) наблюдал в Форт-Дофине на цветках равеналы мадагаскарской нектарниц (Nectarinia sonimanga). Особенно специализированы к птицеопылению цветки стрелитции. У открывающегося цветка два ланцетных чашелистика, обращенных к главной оси соцветия, стоят почти вертикально над горизонтально расположенным кроющим листом. Под чашелистиком тоже почти вертикально поднят небольшой лепесток. Два других, значительно более крупных, остаются вместе с третьим чашелистиком зажатыми кроющим листом. Эти парные лепестки срастаются в единый стреловидный заостренный орган с продольным килем. Сложенные края этого органа держат "в плену" упругий столбик и 5 длинных тычинок. У стрелитции королевской ярко-синий или фиолетовый цвет лепестков контрастирует с оранжевым цветом чашелистиков, что, несомненно, играет роль в привлечении птиц. Птица, садясь на края стреловидного органа, отгибает их и тем самым освобождает упругие тычинки, которые, выгибаясь, растрескиваются и выбрасывают пыльцу, обдавая ею грудку птицы. Благодаря такому триггериому механизму стреловидный орган словно катапультирует пыльники, но продолжает еще удерживать столбик и длинные лопасти рыльца, которые освобождаются лишь при повторных посещениях цветка нектарницами и опыляются принесенной ими пыльцой других цветков.
Плоды стрелитциевых - локулицидные коробочки с жесткими деревянистыми стенками, семена с ярким ариллусом. У равеналы коробочки длиной 7-10 см содержат уплощенные, овальные, почти черные семена с пленчатым ариллусом чистого голубого цвета. Черные, яйцевидные, немного уплощенные семена фенакоспермума несут крупный красновато-оранжевый пушистый ариллус из многочисленных гигроскопичных волосков. Похожий ворсистый ариллус и у округлых семян стрелитции. Ариллус, по-видимому, играет роль при раскрывании плодов и, несомненно, привлекает внимание птиц, однако о распространении семян стрелитциевых известно, к сожалению, очень мало, для этого нужны тщательные наблюдения в природе.
Зародыш стрелитциевых большей частью прямой (у равеналы - изогнутый), лежит в перисперме и окружен остатками эндосперма. Семена равеналы, высыхая, быстро теряют жизнеспособность, но во влажной почве могут долго сохраняться и прорастать при осветлении леса после вырубки. Поэтому равенала быстро заселяет просеки, заброшенные плантации, обочины дорог. Это светолюбивое растение распространено преимущественно на востоке Мадагаскара на опушках и полянах влажных тропических лесов, на болотистых прибрежных равнинах, но может удерживаться и в саванне, теряя часть листьев в засушливый сезон. Фенакоспермум - обитатель влажных тропических лесов по низким болотистым берегам Амазонки и ее притоков. Стрелитции, в отличие от первых двух родов,- растения субтропических лесов Южной Африки, но тоже предпочитают влажные и открытые местообитания, поляны, берега рек.
Стрелитции с их необычными соцветиями, напоминающими голову фантастической птицы, издавна заняли место среди растений оранжерейных коллекций. Стрелитция Николая была описана Э. А. Регелем по экземпляру, зацветшему впервые в 1853 г. в Санкт-Петербургском ботаническом саду. Стрелитцию королевскую выращивают в промышленных хозяйствах Европы для букетов. Равенала часто украшает сады во всех тропических странах. На Мадагаскаре ее стволы используют для построек и на топливо. Семена равеналы съедобны.
Семейство банановые (Musaceae)
Это небольшое палеотропическое семейство состоит из 2 родов и примерно 50 видов.
Род банан (Musa, рис. 219, табл. 46, 2, 2) объединяет свыше 40 видов, распространенных в тропической Южной Азии, на островах Малайского архипелага, Новой Гвинее, в Северо-Восточной Австралии и на островах Тихого океана. Далее всего к западу распространен банан Маклая (М. maclayi, рис. 219, 7), растущий на Новой Гвинее, Таити, Новой Каледонии и Фиджи, откуда он, видимо, занесен на Гавайские острова. Южная граница банана проходит в Квинсленде у 16° ю. ш. Центр сосредоточения наибольшего числа видов банана и происхождения его культурных форм находится в Индии, на полуострове Индокитай, где произрастает около 20 видов банана, и на островах Малайского архипелага, несколько уступающих по числу его видов. Некоторые виды банана выходят за пределы тропиков в теплые субтропические районы. В Индии, в Ассаме и в Юго-Западном Китае бананы встречаются до 27° с. ш. Такой же широты достигает банан японский (М. basjoo, табл. 46, 3) на островах Рюкю.
Род энсета (Enseta) состоит из 7 видов, произрастающих в тропической Африке и Азии. От Камеруна до Эфиопии и к югу до Трансвааля распространена энсета вздутая, или "абиссинский банан" (Е. ventricosum, рис. 219, 8-10). На Мадагаскаре встречается только 1 вид - энсета Перръе (Е. perrieri). В Азии ареал энсеты простирается от Северо-Восточной Индии, Бирмы и Таиланда до Южного Китая, Филиппин, Новой Гвинеи и Явы. Здесь наиболее распространенным видом является энсета сизая (Е. glaucum).
Банановые - гигантские многолетние травы с мощными подземными корневищами и укороченными клубневидными стеблями, которые почти не выступают над землей и несут спирально расположенные огромные листья с необычайно длинными влагалищами. Влагалища охватывают друг друга и образуют плотную многослойную трубку ложного стебля. Ложные стебли нередко достигают в высоту 5-6 м. Растения энсеты вздутой возвышаются до 13 м, а банан огромный (М. ingens), растущий на Новой Гвинее, бывает высотой до 15 м и имеет листья длиной 5-6 м, шириной 0,6-1 м. Наряду с такими гигантами существует банан шершавоплодный (Musa lasiocarpa), растущий в горах провинции Юньнань в Китае, который представляет собой растение не выше 60 см с листьями длиной до 30 см.
Так же как у стрелитциевых и других представителей порядка имбирных, листья банановых развиваются внутри влагалища предыдущего листа, трубчато свернуты и потому несимметричны. У банана правая, наружная половинка листа, стесненная трубкой ложного стебля, всегда уже внутренней, левой. С увеличением числа листьев диаметр полости ложного стебля сокращается и асимметрия развивающихся листьев увеличивается. От мощной главной жилки листа почти под прямым углом с равными интервалами отходят боковые жилки, по которым лист легко разрывается от ветра и дождей. Подобно равенале, бананы в природе почти всегда имеют разорванные листья.
Листья банановых нередко покрыты восковым налетом. Устьица окружены несколькими побочными клетками, мало отличающимися от остальных эпидермальных клеток. Сосуды проводящей системы имеют поперечные стенки с простой перфорацией или заканчиваются косой стенкой с лестничной перфорацией. Вдоль проводящих пучков располагаются ряды клеток с утолщенными стенками и включениями кремнезема. Кристаллы кремнезема и оксалата кальция очень часто встречаются и в обычных паренхимных тонкостенных клетках вегетативных органов. Клеточный сок, вытекающий при порезах ложного стебля, окисляясь на воздухе, становится буровато-оранжевым, а у некоторых видов, например у банана Маклая, он постоянно окрашен в розоватый или фиолетовый цвет благодаря содержанию антоциана.
Растут бананы поразительно быстро. Огромные, 7-8-метровые ложные стебли вырастают всего за 8-10 месяцев, и в этом возрасте растения обычно переходят в репродуктивную фазу. Листья перестают образовываться. Точка роста, заключенная в трубке листовых влагалищ, развивает цветоносный стебель, который быстро растет внутри ложного стебля, и через несколько недель наверху между листьями появляется крупное верхушечное соцветие. После цветения и плодоношения вся надземная часть отмирает. У основания ложного стебля бананы образуют боковые подземные побеги. Они растут некоторое время горизонтально, затем поворачивают к поверхности почвы и дают начало новым ложным стеблям с листьями. Виды энсеты являются монокарпическими растениями. Они обычно отмирают, не образуя отпрысков. Известны лишь отдельные случаи образования вегетативного потомства у старых, отмирающих клубневидных стеблей энсеты.
Соцветие банановых несет на мощной оси крупные плотные кроющие листья, которые в отличие от стрелитциевых, расположены не двурядно, а по спирали, против часовой стрелки. В пазухах кроющих листьев боковые ветви соцветия имеют такую укороченную и приросшую ось, что выглядят просто поперечными выступами главной оси, несущими два ряда цветков. Развитие цветков происходит закономерно, начиная справа, поочередно во внутреннем и наружном ряду. Очевидно, как и у стрелитциевых, это тоже завиток, но претерпевший сильный метаморфоз. У некоторых видов развивается лишь один ряд цветков. Молодое соцветие банановых выглядит как огромная почка, где кроющие листья сближены, сложены черепитчато., как у видов энсеты или у банана текстильного (М. textilis, табл. 46, 4). У культурных бананов они полностью окутывают почку. Эти листья могут быть зелеными, но чаще розовые или ярко-красные, пурпурные либо с фиолетовым оттенком. Раскрываются они поочередно, обнажая цветки, число которых в двурядных парциальных соцветиях может достигать 40. В солнечную жаркую погоду могут раскрываться по 2-3 боковых соцветия, в дождливую они раскрываются вяло, по одному, с большими интервалами. У бананов кроющие листья опадают на вторые сутки, а у энсеты сохраняются и в соплодии. Ось соцветия непрерывно растет, междоузлия его вытягиваются, и на конце все время остается почка, размеры которой по мере цветения уменьшаются.
Цветки банановых зигоморфные, обычно однополые,. В первых, нижних парциальных соцветиях развиваются женские цветки, дающие плоды; в последующих иногда обоеполые, но не завязывающие плодов; затем, до самого верха, образуются мужские цветки, которые после цветения опадают. Сегменты околоцветника у банановых лепестковидные, беловатые или желтые, пять из них срастаются вместе, одевая цветок снаружи (рис. 219, 4, 5). Свободным остается один сегмент внутреннего круга, обращенный к оси соцветия. В цветках банановых обычно 5 тычинок, шестая (у основания свободного лепестка) превращена в стаминодий. В цветках энсеты вздутой развиты все 6 тычинок. Тычинки имеют 2 линейных пыльника, растрескивающихся продольно. Пыльцевые зерна крупные, тяжелые, с безапертурной оболочкой. Гинецей синкарпный, из трех плодолистиков; завязь нижняя, 3-гнездная, с многочисленными анатропными семязачатками, расположенными двумя рядами в центральном углу гнезда. Столбик несет 3- или 6-лопастнре головчатое рыльце. В верхней части завязи в ткани погружены септальные нектарные железки, открывающиеся у основания столбика. Особенно сильно они развиты в мужских цветках, где выделение нектара - единственная функция редуцированной завязи. У культурных бананов один женский цветок дает в сутки 0,10-0,27 г нектара, а мужской - 0,42-0,59 г.
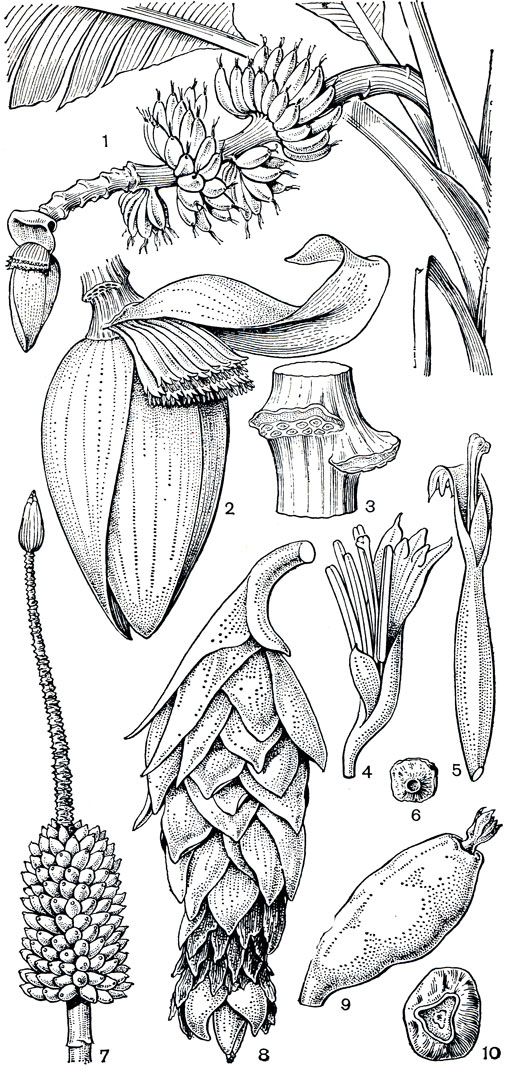
Рис. 219. Банановые. Банан заостренный (Musa acuminata): 1 - соцветие, у основания завязавшиеся плоды; 2 - верхушка соцветия с мужскими цветками; 3 - часть оси соцветия со следами от опавших цветков; 4 - цветок с недоразвитым гинецеем, функционально мужской; 5 - женский цветок; 6 - семя. Банан Мак лая (М. maclayi): 7 - соплодие. Энсета вздутая (Ensete ventricosum): 8 -соплодие; 9 -плод; 10 - семя
Бананы с повисающими соцветиями расцветают вечером, а энсета - в полночь. Цветки издают специфический запах, привлекающий летучих мышей. Ван дер Пэйл (1936) наблюдал на бананах летучих мышей из подсемейства длинноязычковых (Macroglossinae). Подробные наблюдения за опылением бананов провел на Яве и Суматре индонезийский ботаник Назар Hyp (1976). Ночью бананы посещают летучие мыши. Желудки их полны нектара, головы покрыты пыльцой, а на соцветиях остаются следы их когтей. Наутро цветки посещают птицы и многочисленные насекомые. Бананы с пря-мостоячими соцветиями зацветают утром и опыляются главным образом яркими птицами-нектарницами (Nectarinia calcostetha) и мелкими млекопитающими - тупайями. Тупайи, подобно белкам, живут на деревьях и питаются в основном плодами, часто лакомятся нектаром и могут служить переносчиками пыльцы. Интересно, что бананы с вертикально стоящими соцветиями, цветущие днем, имеют цветки, лишенные запаха и выделяющие более жидкий нектар. Н. Hyp наблюдал среди опылителей банана также бабочек, пчел, ос и муравьев.
Многие виды банана, например банан бархатистый (М. velutina) и банан кроваво-красный (М. sanguinea) из Ассама, обладают способностью завязывать плоды и семена и при самоопылении. Это свойство присуще главным образом видам, обитающим на границе ареала, и помогает им выжить в крайних условиях. В большинстве случаев при отсутствии естественных опылителей бананы не плодоносят или иногда образуют бессемянные партенокарпические плоды.
Если цветущие бананы активно посещают животные, то после созревания плодов их буквально атакуют летучие мыши, многочисленные птицы, обезьяны и тупайи. В лесах Явы трудно найти неповрежденные животными зрелые плоды.
Плод банановых - ягода с кожистой оболочкой и сочной мякотью, в которую погружены многочисленные семена. У энсеты плоды довольно сухие, но не раскрывающиеся. Растрескиваются только зрелые плоды банана схизокарпного (М. schizocarpa), растущего на северовосточном побережье Новой Гвинеи. Это редкое для банановых свойство отражено в его видовом эпитете, который буквально означает - "с растрескивающимся плодом". Иногда, правда, раскрываются также и плоды банана бархатистого.
Плоды бананов - удлиненные, цилиндрические, несколько граненые и серповидно изогнутые - знакомы всем. Кроме этой характерной формы, у некоторых видов встречаются короткие овальные, почти круглые или, наоборот, тонкие длинные, роговидно заостренные плоды. При созревании плоды желтеют или краснеют. Соплодия банановых могут быть очень крупными. Так, например, мадагаскарская энсета Перрье дает соплодия массой 25-30 кг, содержащие до 200 плодов, а соплодие культурных сортов банана может состоять из 300 плодов общей массой 50-60 кг.
В плодах банановых 50-100, а иногда даже до 200 семян. Семена уплощенные, округлые или неправильной формы, с твердой темно-коричневой или черной оболочкой. В отличие от стрелитциевых, банановые не имеют ариллуса. На ранних стадиях развития на семяножках имеются нити, которые можно считать таким образованием, но в дальнейшем они дегенерируют. Наличие сочных душистых плодов обеспечивает зоохорное (с участием животных) распространение семян. У банана семя диаметром 3-11 мм, у энсеты семена крупнее, диаметром до 17 мм. Зародыш у банана прямой, а у энсеты - изогнутой Т-образной формы. Питательные вещества запасаются в мучнистом перисперме, эндосперм мало развит. Семена могут долго сохранять всхожесть в почве, покрытой растительным опадом, и прорастают при осветлении участка после вырубок или ветровала. Прорастание подземное, главный корень очень рано отмирает, уступая место многочисленным придаточным корням. Первый лист проростка - влагалищный, не имеет развитой пластинки.
Банановые - обитатели солнечных, открытых полян, лесных опушек, берегов рек. Они образуют заросли во вторичных формациях, на вырубках, заброшенных плантациях, по обочинам дорог. В глубине тенистых лесов они перестают плодоносить и постепенно гибнут. Исключение составляет банан огромный (М. ingens), растущий в густых нотофагусовых лесах в горах Новой Гвинеи. Его сеянцы хорошо развиваются и в густом подлеске. Иногда причиной гибели бананов является не наступление лесной растительности, а конкуренция со злаками, которой они не выдерживают. В сообществах со злаками лучше других уживается банан Балъбиса (М. balbisiana) и энсета Омбле (Е. homblei), встречающиеся в светлых лесах и саваннах. Запас воды и питательных веществ в клубневидном стебле помогает видам энсеты переживать засушливый период, растения теряют листья и иногда выдерживают пожары, сохраняя точку роста, спрятанную в чехле ложного стебля. Довольно выносливы к засухе и виды банана, распространенные в муссонном климате Юго-Восточной Азии. Большинство бананов является обитателями влажного тропического климата и приурочено к небольшим высотам над уровнем моря. В то же время есть горные виды, которые плохо переносят постоянно влажный и жаркий климат. Банан Маклая, бессемянный на небольших высотах, образует семена в горах, на высоте 900-1100 м над уровнем моря. Банан огромный, поднимающийся в горах Новой Гвинеи до 2100 м, гибнет от грибковых заболеваний в посадках близ моря.
Банан - важнейшая культура тропического земледелия. Во многих развивающихся странах экспорт бананов составляет основу экономики. Мировое производство плодов составляет около 24 млн. т и главным образом сосредоточено в странах Латинской Америки. Почти четверть урожая приходится на Индию, Малайзию, Индонезию. Более миллиона тонн бананов выращивают в странах Африки. Создание выносливых сортов позволило продвинуть культуру бананов до 30° с. ш. и 31° ю. ш. в теплые субтропические районы, в Ливан, Испанию, Флориду. На Канарские острова бананы были завезены португальскими мореплавателями еще в 1482 г. Неудивительно, что род банан стал известен ботанике по культурному экземпляру, описанному Карлом Линнеем в 1753 г. в первом издании его знаменитого труда "Species Plantarum" и названному им бананом райским (Musa paradisiaca). Во втором издании своей работы (1763) Линней добавил банан браминов, или банан мудрецов (М. sapientum), тоже относившийся к культурным сортам. Под обоими названиями долгое время в научной литературе фигурировали культурные сорта различного происхождения. По современным представлениям, большинство культурных сортов является результатом длительного отбора мутационных форм банана заостренного (М. acuminata, рис. 219, 1-6) и его скрещивания с бананом Балъбиса (М. balbisiana).
Банан заостренный - широко варьирующий вид, внутри которого выделяют 5 подвидов, легко скрещивающихся между собой. Вид распространен в Южной Индии, на полуострове Индокитай, полуострове Малакка, островах Малайского архипелага, на Новой Гвинее и в Северо-Восточной Австралии. В этом же географическом районе произрастает и банан Бальбиса, который продвигается несколько севернее в Индии до Ассама и в Южный Китай, но не растет в Австралии. Этот вид не обладает такой широкой изменчивостью. В тропической Азии известны естественные межвидовые гибриды этих видов. Оба они имеют гаплоидный набор из 11 хромосом. Культурные сорта большей частью являются триплоидами и вследствие этого не способны к половому размножению. Селекционерами принято условное обозначение набора хромосом банана заостренного латинской буквой А, а банана Бальбиса - латинской буквой В. Диплоидные сорта негибридного происхождения, созданные отбором форм банана заостренного, обозначаются шифром А А. Эти малоурожайные, неустойчивые к заболеваниям сорта имеют ограниченное распространение. Их оттеснили триплоидные сорта с генотипом AAA. К таким сортам относится известный высокорослый сорт "Гро Мишель" ("Cros Michel"). Одно его соплодие может содержать 250 плодов, масса каждого из которых до 200 г. Другую триплоидную мутацию банана заостренного представляет собой популярный карликовый сорт "Дворф Кавендиш" ("Dwarf Cavendish"). Он был распространен в культуре в Южном Китае и поэтому был известен как "китайский банан" (M. chinensis) или "карликовый банан" (M. папа), либо, наконец, как "банан Кавендиша" (M. cavendishii). Высота растений этого сорта около 1 м. Он быстро растет и плодоносит при выращивании в оранжереях ботанических садов. Описанный Линнеем банан райский представляет собой триплоидный гибридный сорт. Среди таких триплоидных гибридов с генотипом ААВ известна большая группа сортов, так называемых плантенов, выращиваемых главным образом в Центральной Африке. Плантены - овощные сорта, плоды которых не используют сырыми. Их пекут в банановых листьях, варят, перерабатывают на муку.
В Индии и странах Юго-Восточной Азии распространены сорта с геномом ABB. Современная селекция направлена на создание устойчивых к грибковым заболеваниям урожайных сортов, получены тетраплоидные гибриды.
Плоды столовых сортов содержат около 75% воды, 22% Сахаров, 1,3% белков и около 10 мг/% витаминов. Они представляют собой ценный диетический фрукт. Особая группа мучнистых сортов происходит от банана Маклая, или океанийского (M. maclayi, или M. fehi, рис. 219, 7), распространенного на островах Океании и в Австралии. Это овощные сорта с оранжевыми плодами, мякоть которых желтого цвета, семена их тоже используются в пищу.
Важной технической культурой тропиков является банан текстильный (М. textilis, табл. 46, 4), происходящий с Филиппинских островов, где его называют "абака". Прочное волокно из его расщепленных влагалищ известно как "манильская пенька". Оно устойчиво к гниению и является ценным сырьем для производства канатов и технических тканей. Подобное же применение находит банан японский (М. basjoo, табл. 46, 3), из которого в Японии изготовляют различные плетеные изделия.
Этот вид выдерживает кратковременные понижения температуры до -8° С, теряя листья и отрастая вновь от корневища, его успешно выращивают на Черноморском побережье Кавказа в качестве декоративного растения.
Энсета вздутая, или "абиссинский банан" (Е. ventricosum, рис. 219, 8-10), растет в тропической Африке во влажных речных долинах, на болотистых местах и лесных полянах, используется в пищу в качестве овощного растения. Молодые стебли и соцветия пекут, молодые плоды маринуют или едят свежими.
Семейство геликониевые (Heliconiaceae)
Это тропическое семейство включает всего лишь один род геликония (Heliconia, рис. 220, табл. 47 и 48) со 150 видами, распространенными главным образом во влажных тропиках Центральной и Южной Америки. Лишь один вариабельный вид - геликония индийская (Н. indica) произрастает в восточном полушарии на островах Океании.