



Растительные сообщества (Т. А. Работнов)
Выдающийся советский ученый В. И. Вернадский разработал представление о биосфере - наружной оболочке Земли, свойства которой определяются жизнедеятельностью организмов.
В. И. Вернадский понимал биосферу широко, включая в нее не только часть земного шара, заселенную организмами в настоящее время, но и земную кору, созданную организмами в прошлые геологические эпохи, например мощные толщи известняков и т. п.
Большинство ученых не разделяют такое широкое понимание биосферы.
Под биосферой обычно понимают сферу современной жизни, т. е. часть наружной оболочки Земли, населенную в настоящее время организмами.
Биосфера состоит из биогеоценозов, образованных организмами совместно со свойственной им косной (неживой) средой (рис. 63).
По теории В. Н. Сукачева - создателя биогеоценологии (науки о биогеоценозах), биогеоценозы состоят из двух основных компонентов - биоценоза (сообщества организмов) и экотопа (косной среды). В состав биоценоза входят растения, образующие растительное сообщество (фитоценоз), животные и микроорганизмы. Среда, в которой обитают организмы (экотоп), определяется условиями климата, гидрологией, почвообразующей породой, почвой. Между организмами и их средой в биогеоценозах существуют сложные взаимосвязи (рис. 64). Биогеоценозы иногда называют экосистемами.
Так как микроорганизмы представлены либо микроскопическими растениями (бактерии, актиномицеты, водоросли, грибы), либо микроскопическими животными (простейшие и др.), то можно говорить, что в состав биоценозов входят и растения и животные. Еще более существенно разделение организмов, входящих в состав биоценозов, на автотрофов и гетеротрофов.
Автотрофы в основном представлены фототрофами - зелеными растениями, способными создавать органическое вещество, используя энергию солнечных лучей. К автотрофам также относятся и хемотрофы - бактерии, получающие энергию в результате окисления некоторых химических соединений, например нитрифицирующие бактерии, окисляющие аммоний в нитриты, а затем в нитраты. Роль хемотрофов в энергетике биогеоценозов невелика. Энергетическую базу для жизнедеятельности биогеоценозов, включая процесс почвообразования, создают зеленые растения. Они продуцируют основную массу органического вещества (первичную продукцию), и потому их называют продуцентами.
Гетеротрофы не способны создавать органическое вещество, используя энергию солнечных лучей или химических соединений. Они могут существовать лишь при обеспечении их энергией органического вещества, созданного другими организмами.
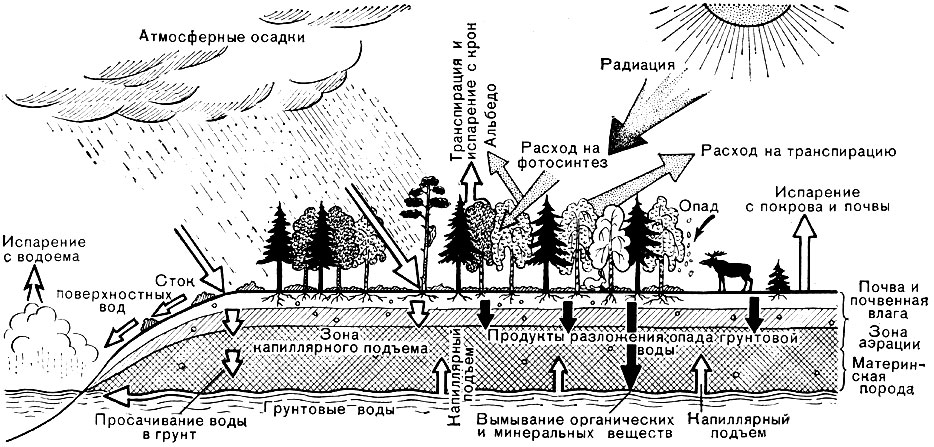
Рис. 63. Схема взаимодействия компонентов биоценоза
К гетеротрофам относятся все животные и все бесхлорофильные растения, включая цветковые паразиты и сапрофиты, грибы, актиномицеты, бактерии (за исключением хемотроф-ных и немногих фототрофных). Гетеротрофы также продуцируют органическое вещество (вторичную продукцию), но в значительно меньших количествах, чем автотрофы-фототрофы. Биоценозы можно рассматривать как закономерные системы взаимозависимых двух групп организмов - автотрофов и гетеротрофов. Гетеротрофы не могут существовать без автотрофов, поскольку получают от них энергию. Однако и автотрофы не могут существовать в отсутствие гетеротрофов, точнее, в отсутствие сапротрофов - организмов, использующих энергию отмерших органов растений, а также энергию, содержащуюся в экскрементах и трупах животных. В результате жизнедеятельности сапротрофов происходит минерализация так называемого мертвого органического вещества. Минерализация в основном происходит в результате деятельности бактерий, грибов и актиномицетов. Однако роль животных в этом процессе также очень велика. Размельчая растительные остатки, поедая их и выделяя как экскременты, а также создавая в почве более благоприятные условия для деятельности сапротрофных микроорганизмов, они ускоряют процесс минерализации отмерших органов растений. Без этого процесса, ведущего к поступлению в почву доступных форм минерального питания, растения-автотрофы быстро использовали бы наличные запасы доступных форм макро- и микроэлементов и не смогли бы жить; биогеоценозы превратились бы в кладбища, переполненные трупами растений и животных.
Формирование биогеоценозов происходило в течение длительного времени, в период которого подбирались виды организмов, способные существовать совместно друг с другом в данных условиях среды. Это обстоятельство необходимо учитывать для понимания сложных взаимоотношений, существующих в биогеоценозах между отдельными видами организмов, автотрофами и гетеротрофами, организмами и средой.
Знакомясь с любым растительным сообществом (например, в лесу, на лугу, в степи, в поле, занятом посевом), нельзя забывать, что луг, лес, болото, степь (рис. 66 - 69), поле - это биогеоценозы, составной частью которых являются существующие растительные сообщества (лесные, луговые, степные, посевы). Поскольку растительное сообщество всегда входит как компонент в биоценоз и биогеоценоз, то, естественно, его свойства существенно зависят от зоокомпонентов и косной среды биогеоценоза.
В состав растительных сообществ входят не только сосудистые растения, мхи и лишайники, но и грибы, бактерии, актиномицеты, микроскопические водоросли. Поэтому определение полного флористического состава растительных сообществ представляет большие трудности и возможно лишь при использовании специальных методов исследования. Однако многие очень существенные признаки растительных сообществ (например, внешний вид, структура, продуктивность) определяются составом сосудистых растений. Поэтому состав этой группы растений можно считать важнейшим признаком растительных сообществ.
Большинство растительных сообществ характеризуется достаточно богатым флористическим составом группы сосудистых растений. Например, в хвойных лесах (еловых, сосновых, лиственничных) нашей страны обычно совместно произрастает до 30 и более видов; в дубовых лесах - до 40 - 50; на лугах - 30 - 50; в луговых степях - до 100 и более видов; в типичных дерновинно-злаковых степях - 50 - 70 видов и т. д.
Наибольшего богатства флористический состав растительных сообществ достигает в тропических лесах, где совместно произрастает до 100 видов деревьев, не считая видов травянистых растений. Лишь в особых условиях, исключающих возможность произрастания большей части видов растений (например, при сильном засолении), формируются растительные сообщества из немногих видов, в редких случаях из одного вида сосудистых растений. Иногда одновидовые растительные сообщества представляют сравнительно непродолжительную возрастную стадию развития какого-либо биогеоценоза. Примером могут быть так называемые мертвопокровные леса, где из-за недостатка света под пологом деревьев (от сомкнутости их крон) другие растения произрастать не могут.
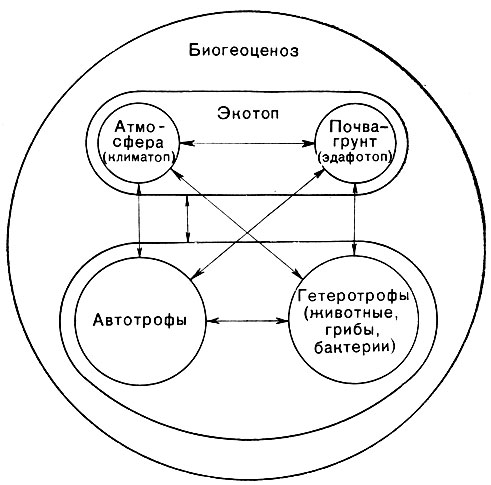
Рис. 64. Схема взаимного влияния лесного фитоценоза и условий среды
Не меньшее значение для характеристики растительных сообществ имеет то, что они образованы не только многими видами-, но и видами, различными по своим экологическим и биологическим свойствам и по значимости в определении особенностей растительного сообщества.
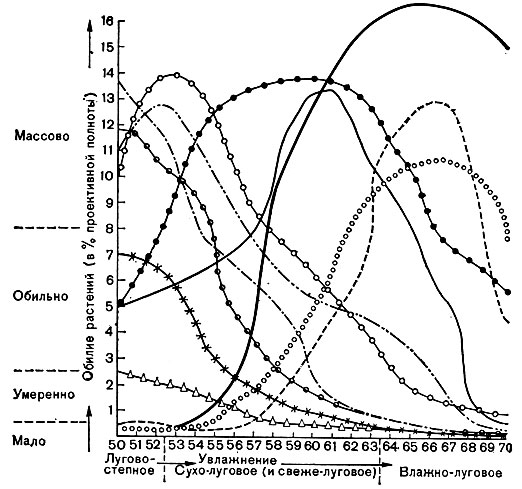
Рис. 65. Распределение отдельных видов растений (каждому виду соответствует определенная кривая) в зависимости от увлажнения
Выдающийся советский геоботаник Л. Г. Раменский обосновал положение об экологической индивидуальности видов растений. Нет двух видов, одинаково относящихся к условиям произрастания (к обеспечению светом, водой, элементами минерального питания и т. п.), имеющих одинаковые кривые распределения при изменении условий произрастания в пространстве или во времени. Это видно из графика, составленного Л. Г. Раменским, демонстрирующего изменения проективного покрытия отдельных видов луговых растений в зависимости от условий произрастания (цвет. табл. 20), а также на рисунке 65, где показано распространение видов растений в зависимости от увлажнения и богатства почвы.
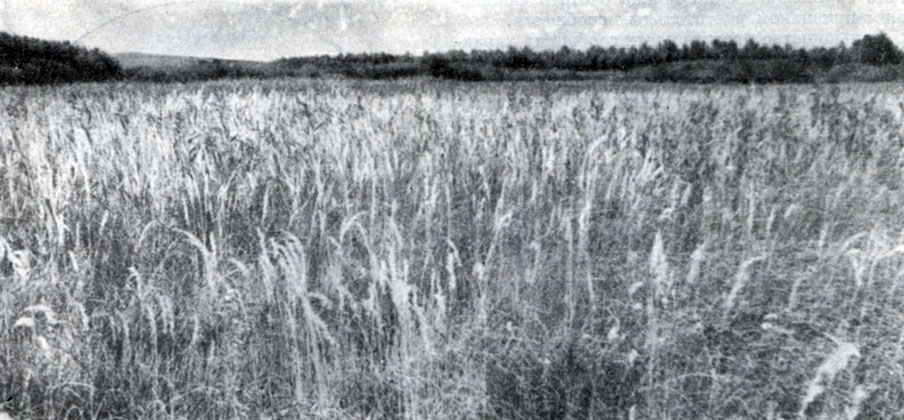
Рис. 66. Вейниковый луг
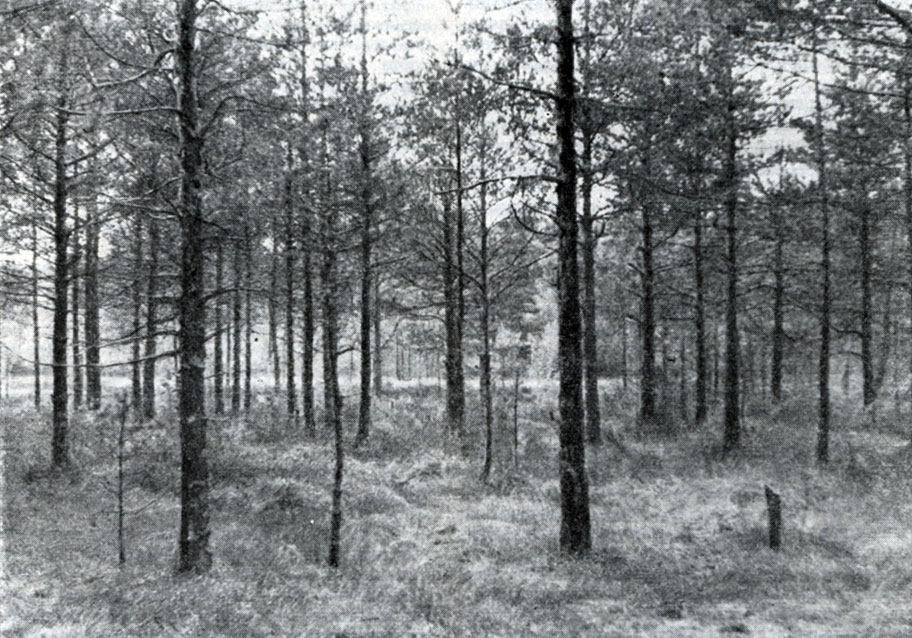
Рис. 67. Сосновый лес
Отдельные виды растений своеобразны не только экологически (по их отношению к условиям произрастания), но и биологически (по приспособлениям, обеспечивающим им возможность существования и размножения в определенных условиях среды).
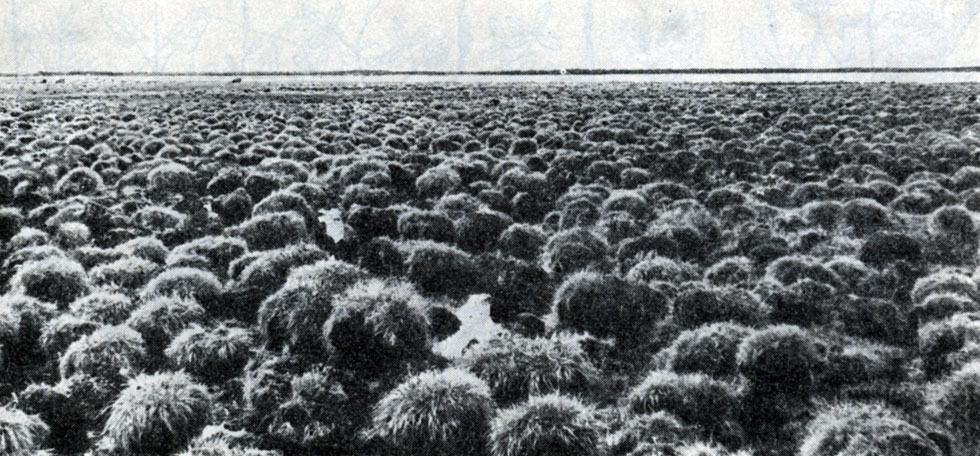
Рис. 68. Кочкарное болото
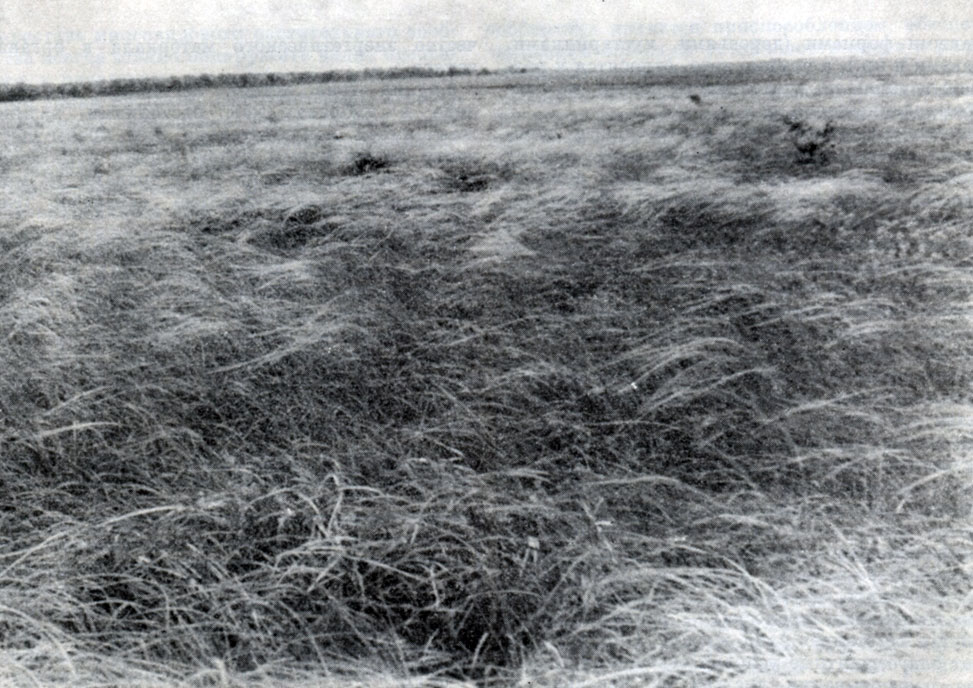
Рис. 69. Ковыльная степь
Растительные сообщества образованы многими видами, а это означает, что в состав сообщества входят виды, различные по своим экологическим и биологическим свойствам. Такие различия нередко настолько значительны, что виды, входящие в состав одного и того же сообщества, представлены различными жизненными формами (деревьями, кустарниками, травами и пр.), а помимо того, относятся к различным типам по длительности жизни, по способам размножения и т. д.
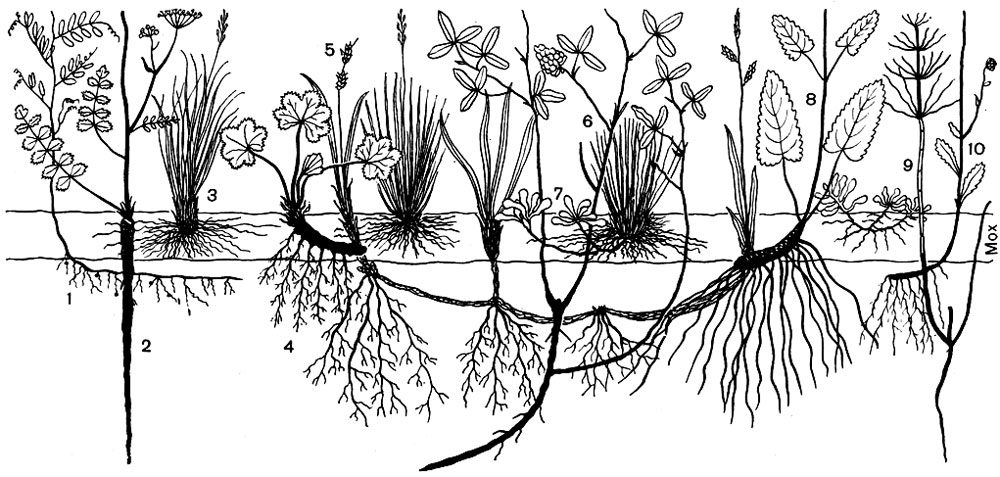
Рис. 70. Вертикальный разрез через надземную и подземную части биогеоценоза суходольного луга. 1 - мышиный горошек; 2 - бедренец-камнеломка; 3 - овечья овсяница; 4 - манжетка; 5 - просяная осока; 6 - средний клевер; 7 - кошачья лапка; 8 - лекарственная буквица; 9 - хвощ; 10 - нивяник
Примером могут быть растительные сообщества еловых лесов, в состав которых входят деревья (ель), кустарники (крушина ломкая, жимолость лесная), кустарнички (брусника, черника), травы (кислица обыкновенная, майник, седмичник и др.), гипновые мхи. Среди трав преобладают многолетники, размножающиеся вегетативным путем, но встречаются и однолетники, размножающиеся исключительно семенами (например, полупаразитное растение марьяник луговой).
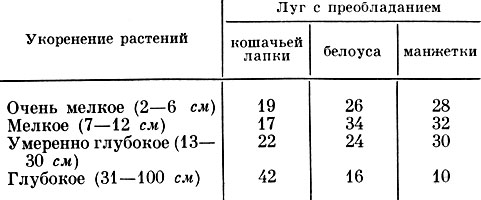
Соотношение (в %) видов трав с различной глубиной укоренения на материковых лугах Карельской АССР
Кустарнички представлены как вечнозеленой брусникой, так и ежегодно теряющей осенью листья черникой.
В состав растительных сообществ широколиственных лесов, в частности в дубравах, входят деревья (дуб, клен, липа), кустарники (лещина), многие виды трав. Среди трав выделяются две группы видов, отличающиеся по приуроченности периода вегетации либо к весне, либо к лету. К первой группе относятся весенние эфемероиды (хохлатки, ветреница лютиковая, пролеска) - растения, начинающие вегетацию рано весной. Они используют благоприятные условия освещения до начала развертывания листьев на деревьях и успевают за короткий срок образовать соцветия, дать плоды и накопить достаточное количество энергетического материала в органах запаса.
Группа трав летней вегетации представлена в дубравах как растениями, размножающимися исключительно или преимущественно вегетативным путем (сныть обыкновенная, осока волосистая), так и травами, размножающимися исключительно семенами (ежа сборная, бор развесистый).
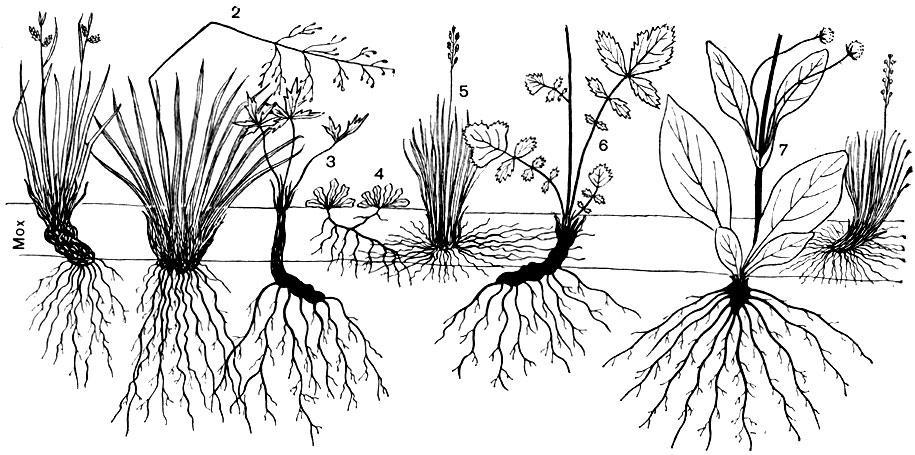
Рис. 71. Вертикальный разрез через надземную и подземную части биогеоценоза суходольного луга. 1 - осока бледная; 2 - щучка дернистая; 3 - лютик едкий; 4 - кошачья лапка; 5 - овсяница овечья; 6 - гравилат речной; 7 - сивец луговой
Приведенные выше примеры характеризуют также различия видов, входящих в состав растительных сообществ, по высоте их надземных органов (деревья, кустарники, травы, мхи). Такие же различия наблюдаются и по глубине проникновения корней отдельных видов, о чем можно судить по данным таблицы, полученным при изучении трех типов лугов, а также по рисункам 70 и 71.
В составе многовидового растительного сообщества всегда можно обнаружить виды, относящиеся к различным экологическим и биологическим типам растений. Следовательно, к числу существенных признаков растительных сообществ можно отнести разнообразие экобиоморфного состава их компонентов.
Разнообразие состава растительных сообществ объясняется еще тем, что, как правило, каждый вид представлен в них большим числом особей, отличающихся по возрасту и жизненному состоянию. Совокупность особей любого вида в пределах конкретного растительного сообщества образует ценотическую популяцию, или ценопопуляцию. В состав ценопопуляций видов цветковых растений могут входить жизнеспособные семена, находящиеся в почве или на ее поверхности, всходы, ювенилы (молодые растения, отличающиеся от взрослых размерами и формой листьев), переходные от ювенильных к взрослым (имматурные) и взрослые растения. В состав популяций некоторых трав входят также особи, находящиеся в состоянии вторичного покоя (корневища, луковицы, клубни, неразвившиеся надземные побеги).
Ценопопуляций отдельных видов в одном и том же растительном сообществе могут сильно отличаться друг от друга как по числу особей на единицу площади, так и по соотношению особей различных возрастных групп (возрастному спектру). Сложный состав популяции сообщества является приспособлением, обеспечивающим большую устойчивость видов в растительных сообществах.
Важное значение имеет свойство семян многих видов растений долго сохранять всхожесть при погребении их в почве. С этим связано большое накопление жизнеспособных семян в почвах лугов, лесов, степей. Число их колеблется в почвах лугов от нескольких тысяч до нескольких десятков тысяч на 1 м2 ; в почвах лесов - от нескольких сотен до нескольких тысяч: на 1 м2 ; в почвах луговой степи под Курском обнаружено 18 000 семян на 1 м2, а в почвах пустынь Средней Азии - от нескольких десятков до нескольких сотен. Благодаря запасу жизнеспособных семян в почве даже при отсутствии обсеменения растений этих видов может происходить их семенное возобновление. Участие в составе ценопопуляций молодых особей (всходов, ювенилов и имматуров) означает, что в благоприятных условиях они могут превратиться во взрослые растения, что обеспечивает устойчивое положение вида в сообществе.
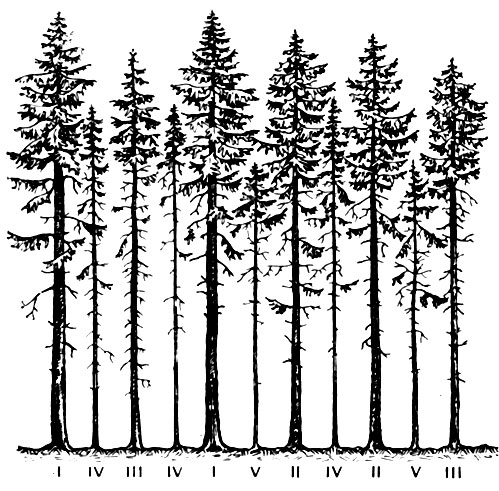
Рис. 72. Распределение деревьев в сообществе по классам Крафта
Большое значение также имеют различия в жизненном состоянии растений в пределах группы взрослых особей. Это особенно заметно в лесах, при изучении которых лесоводы давно используют классификацию Крафта. По этой классификации деревья в лесу разделяются в соответствии с их жизненным состоянием на пять классов. Наиболее мощноразвитые деревья относятся к первому классу, а сильноугнетенные деревья, кроны которых целиком размещаются под пологом более высоких деревьев, - к пятому классу (рис. 72). Деревья, занимающие по жизненному состоянию промежуточное положение, соответственно относятся ко второму, третьему и четвертому классам. Такую же дифференциацию взрослых особей по их жизненному состоянию можно наблюдать и у многолетних травянистых растений в травяных растительных сообществах: одни особи цветут и плодоносят; другие не образуют генеративных побегов, но их вегетативные органы развиты нормально; третьи явно угнетены.
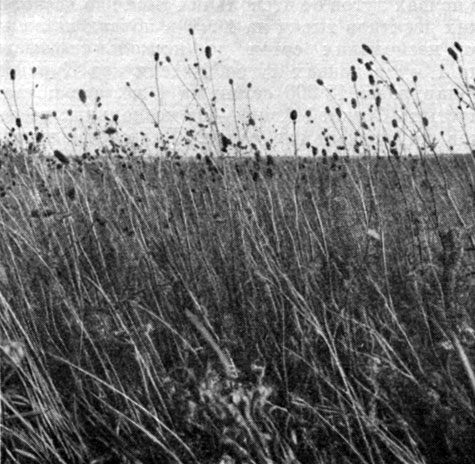
Рис. 73. Луговое растительное сообщество - луг с преобладанием кровохлебки
К очень существенным признакам многовидовых растительных сообществ относится дифференциация видов, входящих в состав растительных сообществ, по их значимости в определении свойств сообществ. В любом растительном сообществе можно различать преобладающие виды, образующие основную массу надземных органов, - доминанты - и ВИДЫ, принимающие относительно небольшое участие в сложении сообщества.
В растительных сообществах, состоящих из видов, относящихся к различным жизненным формам, образующим достаточно сомкнутые покровы (ярусы), можно различать несколько преобладающих растений - доминантов. Например, в еловом лесу с выраженным ярусом из черники и гипновых мхов можно различить три доминанта: ель - в древесном ярусе, чернику - в кустарничковом ярусе, гипновый мох - в моховом ярусе. В некоторых растительных сообществах (например, в тропических лесах) очень трудно выделить один-два доминанта, поскольку в их составе имеется несколько или даже много видов, принимающих Примерно одинаковое участие в сложении сообщества. Это же наблюдается в некоторых травяных, в частности луговых, растительных сообществах (рис. 73).
В растительных сообществах создается особая среда - особый климат (фитоклимат), особые почвенные условия. Доминанты, обладающие большой средообразующей способностью, получили название эдификаторов - строителей сообществ. Примером эдификаторов может быть ель в сообществах незаболоченных еловых лесов. Образуя сомкнутый ярус, ель создает особый фитоклимат: резкое снижение освещенности, особый температурный режим, повышенную влажность воздуха и т. д. В связи с большим количеством опада (хвои, веток, коры, шишек), из которого формируется лесная подстилка, ель оказывает большое влияние на почву. Однако в сообществах заболоченных лесов, где сомкнутый ярус из ели отсутствует, а сфагновые мхи образуют сплошной мощный моховой покров, основное средообразующее воздействие оказывает не ель, а сфагновые мхи, и потому они, а не ель являются эдификатором таких сообществ.
В результате особых условий произрастания, создающихся в растительных сообществах, растения, входящие в их состав, отличаются от одновозрастных особей тех же видов, выросших вне сообществ. Это было давно установлено при изучении деревьев - ели, сосны, дуба и др. Деревья, выросшие вне леса, т. е. без воздействия на них других деревьев, обычно имеют более толстый ствол с хорошо развитой почти от основания кроной. Деревья, выросшие в лесу, характеризуются большей высотой; их ствол более постепенно, чем вне леса, сужается кверху; крона менее развита и приурочена к самой верхней части ствола (рис. 74). Изменения в форме роста наблюдаются и у травянистых растений (рис. 75).
Произрастание в условиях сомкнутых растительных сообществ оказывает большое влияние не только на форму роста растений, но и на способность размножаться семенами и вегетативным путем. Растения, возникшие из семян, в условиях сообществ развиваются медленнее, чем вне сообществ, достигая способности цвести и плодоносить через более продолжительный срок. Например, многие луговые растения в питомниках (на грядках) зацветают на второй год жизни или даже в первый год жизни, если семена высеваются с осени. А в луговых сообществах большинство особей этих видов зацветает не ранее, как в возрасте 3 - 5 лет, а многие из них - лишь в возрасте около 10 и более лет. То же наблюдается и у древесных растений, образующих лесные сообщества. Деревья (ель, дуб, сосна) начинают плодоносить в лесах позже и затем плодоносят реже и менее обильно, чем деревья тех же видов вне леса.
Как правило, растения в растительных сообществах в какой-либо степени угнетены по сравнению с одновозрастными особями тех же видов, выросшими в тех же условиях почв и климата вне сообществ.
Однако существуют некоторые виды, которые не могут произрастать вне определенных растительных сообществ. К ним относится, например, бесхлорофильное растение-сапрофит подъельник, распространенный в тенистых лесах, где он использует с помощью грибного симбионта в качестве источника энергии лесную подстилку и корни деревьев.
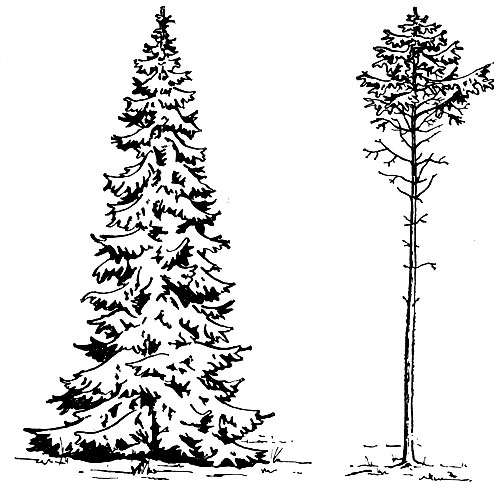
Рис. 74. Влияние условий произрастания на форму дерева: слева - вне леса; справа - в лесу
Многие виды растений приурочены лишь к определенным растительным сообществам, будучи хорошо приспособлены к свойственной этим сообществам фитосреде. Примером может быть кислица обыкновенная, успешно произрастающая в темнохвойных лесах в условиях значительного затенения и обычно быстро исчезающая при уничтожении леса. Однако в опытах выращивания кислицы из семян вне природных сообществ она росла при полном солнечном освещении лучше, чем при затенении в условиях леса.
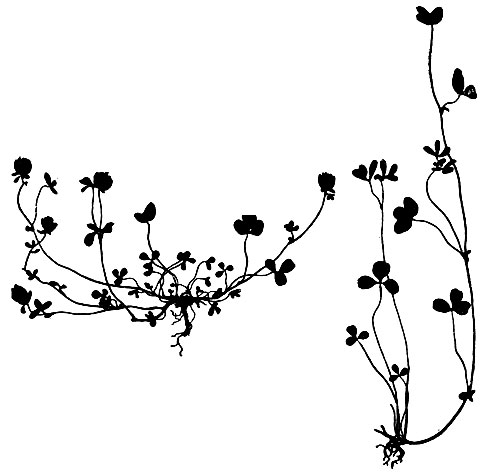
Рис. 75. Влияние условий произрастания на клевер розовый; слева - на открытом месте; справа - в луговом травостое
Для уяснения причин угнетения растений при произрастании их в растительных сообществах необходимо рассмотреть сложные взаимоотношения, возникающие между растениями при их совместном произрастании.
Из всех форм взаимодействия между растениями в растительных сообществах наибольшее значение имеет изменение среды под влиянием жизнедеятельности самих растений. Эти изменения происходят в результате того, что каждое растение в процессе своей жизнедеятельности либо использует солнечную энергию, воду, элементы минерального питания и пр., в связи с чем обеспеченность соседних растений соответствующими условиями снижается; либо выделяет в окружающую среду продукты обмена веществ. Помимо того, большое значение в изменении среды имеет, во-первых, поступление отмерших органов растений в почву и на ее поверхность; во-вторых, создание особого фитоклимата в результате образования надземными органами растений более или менее сомкнутого покрова.
Потребление растениями необходимых для их жизни энергии и веществ создает в растительных сообществах условия, при которых не хватает наличных ресурсов для удовлетворения потребностей в них всех растений, входящих в состав сообщества. Возникает состояние, получившее название конкуренции за свет, воду, минеральное питание и т. д. Растения, обладающие какими-либо приспособлениями, позволяющими им более полно использовать необходимые для их жизни ресурсы или какой-либо из них (например, свет), имеют преимущества перед растениями, не обладающими этими приспособлениями. Первые растения более конкурентоспособны, чем другие. Конкурентная способность растений может изменяться от одного растительного сообщества к другому, в зависимости от условий произрастания. Она также зависит от воздействия на растения других компонентов сообществ (паразитных растений, животных-фитофагов и т. д.). Поражение паразитными грибами и бактериями, повреждение животными, ослабляя растения, снижают их конкурентную способность и косвенно повышают конкурентную способность их неослабленных соседей.
Каждое растение в процессе своей жизни выделяет в окружающую среду (в атмосферу, в почву) продукты своей жизнедеятельности, в том числе различные органические соединения. Продукты обмена веществ выделяют все органы растений, в особенности корни. Содержащиеся в выделениях вещества, в том числе и высокомолекулярные, могут поглощаться соседними растениями.
В многочисленных опытах, проведенных в лабораторных условиях, в чашках Петри, в вазонах, на искусственных средах (фильтровальная бумага, дистиллированная вода, песок), было установлено, что в этих условиях прижизненные выделения одних растений могут оказывать значительное влияние на другие растения. Однако результаты таких опытов нельзя переносить на условия, имеющиеся в природных растительных сообществах.
В настоящее время нет достоверных фактов о непосредственном токсическом влиянии корневых выделений одних растений на другие растения в природных сообществах. Для объяснения этого явления следует иметь в виду, что состав корневых выделений и их количество, по-видимому, специфичны для каждого вида, а в пределах вида - для особей различного возраста. Этот состав зависит и от условий произрастания. В частности, при отклонении условий жизни от оптимальных выделение активных веществ может возрастать. Кроме того, неоднократно высказывалось положение о токсичности продуктов метаболизма растений для особей того же вида, и в связи с этим весьма вероятно, что корневые выделения растений содержат вещества токсичные для особей того же вида и других. А так как почва, в отличие от водной и воздушной среды, характеризуется неподвижностью, то сухопутные растения могли существовать лишь при условии детоксикации их корневых выделений, а она в основном осуществляется микроорганизмами.
В процессе естественного отбора формировались связи наземных растений с микроорганизмами, массово обитающими в непосредственной близости к корням - в ризосфере, способными к детоксикации корневых выделений. В растительных сообществах корни особей отдельных видов обычно входят в контакт с корнями особей других видов. Поэтому естественно, что формирование видового состава сообществ происходило на основе подбора видов, способных произрастать совместно, включая подбор видов, в ризосферах которых имеются микроорганизмы, способные к детоксикации метаболитов не только данного вида, но и других видов, произрастающих вместе с ним. Этим можно объяснить отсутствие или крайнюю скудость данных о токсическом влиянии корневых выделений одних растений на другие в природных условиях.
Корневые выделения отдельных видов растений, оказывая специфическое воздействие на микроорганизмы, в том числе на азотобактер, денитрификаторы и прочие, косвенно влияют на взаимоотношения между видами в сообществах, определяя их конкурентную способность.
Среди прижизненных выделений растений особое место занимают органические вещества, вымываемые из надземных органов растений. В ряде случаев эти вещества оказывают токсическое влияние на соседние растения. Например, вещества, вымываемые из листьев горькой полыни, отрицательно влияют на произрастающие совместно с ней растения (фенхель, любисток, перечную мяту и др.). Но это бывает не всегда. Кроме того, во многих случаях токсическое влияние веществ, вымываемых из листьев, наблюдается лишь для видов, которые совместно в природных условиях не произрастают.
Большое значение в определении взаимоотношений между видами растений может иметь опад (отмершие части растений, поступающие в почву и на ее поверхность). В сообществах, не использующихся или лишь эпизодически использующихся человеком (например, в лесах), опад может скапливаться в больших количествах, образуя подстилку. В результате жизнедеятельности сапротрофных организмов (животных, грибов, бактерий, актиномицетов) происходит минерализация отмерших остатков растений; при этом продукты жизнедеятельности некоторых сапротрофных грибов могут оказывать токсическое влияние на сосудистые растения.
Особую форму взаимоотношений между растениями в сообществах представляют паразитизм, симбиоз. Органы паразитов проникают внутрь тканей хозяина, в его межклетники и даже в клетки. Иногда тело паразита целиком располагается в теле хозяина. Аналогичное взаиморасположение бывает и при симбиозе. Тесный контакт паразита с хозяином или двух симбионтов создает возможность прижизненного обмена веществ между ними. Паразитирование одного растения на другом широко распространено в растительных сообществах. Среди паразитных растений различают настоящие (полные) паразиты и полупаразиты. Первые получают от автотрофов и энергию и вещества (включая воду и элементы минерального питания). Вторые имеют зеленые листья, способные к фотосинтезу, и от растений-хозяев получают лишь воду и минеральные вещества, а иногда и энергетический материал. Между настоящими паразитами и полупаразитами имеются переходные формы.
Наиболее широко распространены паразитные грибы и бактерии. Вероятно, нет ни одного растительного сообщества, в котором бы они отсутствовали. Они поселяются на надземных и подземных органах древесных и травянистых растений.
В состав некоторых растительных сообществ входят и цветковые паразиты. Известно около 2000 видов цветковых полупаразитов, относящихся к 8 семействам и 83 родам, и свыше 500 видов настоящих паразитов из 9 семейств и 52 родов. Особенно много видов полных паразитов в семействах раффлезиевых, баланофоровых, заразиховых и повиликовых. Полные цветковые паразиты наиболее широко распространены в тропических странах. В ССС