



Порядок Пероноспоровые (Peronosporales) (Н. С. Новотельнова)
Пероноспоровые по сравнению с сапролегниевыми и лептомитовыми представляют собой следующий этап приспособления грибов к жизни на суше. Это довольно древняя группа, возникновение которой относят к палеозойской эре (карбон), наиболее эволюционировавшая среди оомицетов. В ней насчитывается несколько сотен видов, причем наибольшее их число входит в семейство пероноспоровых (Peronosporaceae), представители которого характеризуются более совершенными признаками, тогда как другие семейства содержат значительно меньше видов и эволюционно менее прогрессировали.
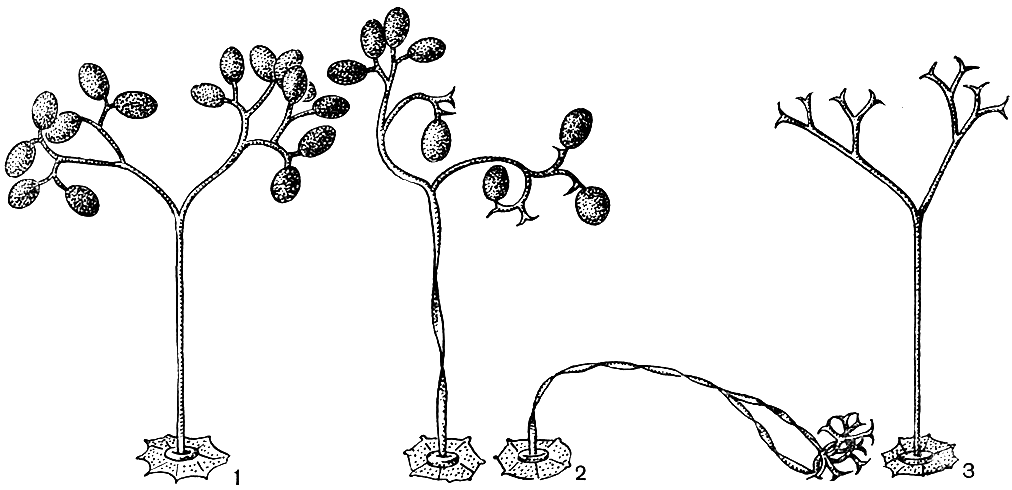
Рис. 22. Механизм разбрасывания конидий спороносцами пероноспоры (Peronospora tabacina): 1 - спороносец, выступающий из устьица; 2 - торзионное движение спороносцев; 3 - спороносец после сбрасывания спор
Порядок пероноспоровых делят на 3 семейства: питиевые, цистоповые и пероноспоровые.
По приуроченности к среде обитания виды пероноспоровых грибов можно отнести к гидрофилам, зоофилам и фитофилам.
Гидрофилами и зоофилами являются лишь некоторые представители семейства питиевых, тогда как преобладающее большинство видов относится к фитофилам. Соответственно этому у них выработались и различные приспособления для расселения в природе по воздуху, по воде, с помощью животных и человека.
Приспособления для распространения в водной среде сохранились у представителей всех семейств порядка. В цикле развития многих видов имеется стадия подвижных зооспор. Однако водная среда, играющая основную роль в распространении настоящих водных грибов, имеет у пероноспоровых грибов лишь ограниченное значение, обеспечивая только кратковременные связи гриба с водным субстратом.
Представителям родов питиум (Pythium), фитофтора (Phytophthora), склероспора (Sclerospora), базидиофора (Basidiophora), плазмопара (Plasmopara), цистопус (Cystopus) и отчасти пероноспора (Peronospora) свойствен особый механизм образования и выталкивания зооспор из их вместилищ - зооспорангиев, которые или отчленяются от спороносцев, или (у наиболее примитивных форм) остаются прикрепленными к несущим их гифам. Типично наземные представители семейства пероноспоровых выработали другие приспособления для распространения в природе. У них известно наличие особых гигроскопических торзионных механизмов. Древовидно разветвленные спороносцы под влиянием даже небольшого изменения влажности воздуха способны к вращению вокруг длинной оси. Вращение сопровождается сбрасыванием созревших спор с ветвей, и последние, подхваченные токами воздуха, переносятся на большие расстояния. Предполагается, что клеточные стенки спороносцев, состоящие у пероноспоровых грибов из целлюлозы, обладают спиральной структурой, и это определяет их торзионные свойства (рис. 22).
Расселение пероноспоровых грибов в природе происходит и при помощи человека. Этим способом в основном распространяются виды, паразитирующие на хозяйственно-ценных, интродуцированных человеком растениях. Клубни, плоды, луковицы, отводки, отдельные органы и целые растения, пораженные этими грибами, разносят своих спутников на дальние поля, в другие страны и на новые континенты.
Не уничтоженные и не обезвреженные остатки таких растений обеспечивают сохранение покоящихся форм пероноспоровых грибов в условиях почвы и возобновление видов из года в год.
Пероноспоровые грибы чрезвычайно широко распространены на земном шаре. Некоторые из них встречаются решительно повсюду, где произрастают высшие растения. К ним относятся, например, цистоповые грибы, обнаруживаемые и за полярным кругом, и в тропиках. При продвижении с юга на север количество видов заметно уменьшается. Благодаря особенностям своего развития и образу жизни наибольшее распространение они имеют в низменностях, где поселяются на равнинах в стациях, примыкающих к рекам, озерам и другим естественным и искусственным водоемам, отличающихся особым микроклиматом, главным образом высокой влажностью. Многие виды обитают в предгорных зонах, отдельные встречаются и в горах, преимущественно в сырых ущельях на теневыносливых растениях. В нижнем горном поясе, примерно до 1000 м над уровнем моря, способны обитать грибы довольно большого числа видов. В высокогорьях - в средней, верхней и субальпийской зонах - их заметно меньше. Но иногда Basidiophora entospora и отдельные виды родов Plasmopara и Peronospora поднимаются до высоты 3000-3800 м над уровнем моря, в зону, граничащую с вечными снегами. Определенные равнинные виды не поднимаются в высокогорья, а высокогорные виды не спускаются в равнины. Только высоко в горах встречаются, например, Peronospora dipelta и P. gypsophilae. В степях и пустынях также обитает незначительное число видов. Однако и в пустыне зарегистрированы отдельные виды пероноспоровых грибов. В пустынях Средней Азии встречается, например, Plasmopara pygmaea на анемоне, P. consolidae на дельфиниуме, в условиях пустыни центральной части Араратской долины иногда обильно развивается Peronospora effusa и другие виды.
По характеру развития пероноспоровые грибы - эфемеры. Они требуют короткого времени для образования спороношения и затем относительно быстро отмирают, но при помощи своих спор, попавших на благоприятные субстраты, развиваются заново, возрождаясь в новых поколениях, формирующих новые генерации спор, многократно повторяющиеся в течение вегетационного периода.
Наибольшего развития пероноспоровые грибы достигают в ранневесенний, весенний и весеннелетний периоды. В это время года, по существу, во всех зонах обитания нарастает численность видов и частота их появления. Некоторый подъем развития пероноспоровых грибов происходит и осенью, что связано с выпадением обильных осадков и смягчением температурного режима.
Самые ранние находки пероноспоровых грибов в средней полосе нашей страны относятся к апрелю - маю, когда они появляются на анемонах, сныти, дымянке, хохлатке. Преобладающее число видов отмечается в июне, наиболее благоприятном по количеству выпадаемых осадков. На севере в условиях Западной Сибири виды пероноспоровых грибов появляются позднее, обычно в последних числах мая; первыми из них под пологом осинового леса обнаруживаются на сныти Plasmopara aegopodii и на герани P. geranii-pratensis. Большинство видов развивается во второй половине июня, в первой и второй декадах июля, а в отдельные годы и в августе. В Средней Азии пероноспоровые грибы появляются значительно раньше. Даже в начале второй декады февраля можно увидеть Peronospora media, P. lepidiisativa, P. polygoni, однако столь же быстро, уже через месяц, развитие пероноспоровых грибов затухает, так как они не выносят низкую влажность воздуха и высокую температуру.
У пероноспоровых грибов тело состоит из грибницы, более или менее разветвленной, с гифами, довольно тонкими у представителей одних семейств (2-3 мкм) и относительно толстыми у других (7-12 мкм). В состав оболочек гиф входит целлюлоза. Мицелий, как правило, в начале развития несептированный, но впоследствии изредка образует перегородки, чаще всего при отделении старых участков гиф от нарастающих новых. Кроме того, на нем всегда возникают перегородки, вычленяющие органы спороношения.
Помимо однолетнего мицелия, у пероноспоровых грибов имеется мицелий многолетний, способный сохраняться в латентном состоянии внутри некоторых органов растений, например в луковицах, семенах и т. п., или продолжать активно развиваться в корнях, стеблях, стволах, ветвях многолетних растений.
У сапрофитных видов грибница стелется главным образом по поверхности субстрата, у паразитных приурочена к жизни в организме хозяина, разрастаясь там локально, в виде отдельного небольшого очага, или распространяясь диффузно по всему растению. Она пронизывает все его органы - корни, стебель, листья, цветки и цветоносы, плоды и плодоножки, семена (семенную оболочку), а иногда и завязь.
В процессе эволюции пероноспоровых грибов и адаптации к водным и наземным условиям существования у них выработались многие ценные приспособительные вегетативные признаки. Для длительного переживания при неблагоприятных условиях среды мицелий формирует хламидоспоры - образования с относительно толстой оболочкой и с большим запасом питательных веществ.
В оогонии возникает (в отличие от других оомицетов) лишь одна ооспора. Ооспоры, заполняющие (плеротические) оогоний, или ооспоры, не заполняющие (аплеротические) оогоний, у грибов разных видов имеют оболочку различной скульптуры - гладкую, складчатую, бугорчатую, бородавчатую, сетчатую, шиповатую (рис. 23). Известны случаи, когда ооспоры образуются без оплодотворения, партеногенетически.
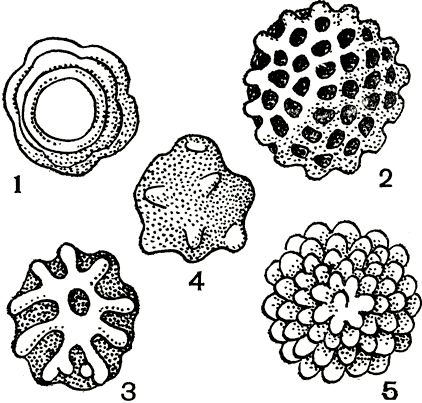
Рис. 23. Ооспоры пероноспоровых грибов: 1 - плазмопара на астрах (Plasmopara asterea); 2 - плазмопара на подсолнечнике (P. helianthi); 3 - пероноспора (Peronospora herniaris); 4 - цистопус (Cystopus tropicus); 5 - цистопус (С. candidus)
Своего рода "забота о потомстве" имеется у высших представителей порядка Peronosporales - членов семейств пероноспоровых и цистоповых. У этих облигатных паразитов оплодотворение по месту заложения половых органов обязательно внутреннее, глубинное, при котором зигота оказывается защищенной многими слоями клеток хозяина, тогда как у полупаразитов из семейства питиевых оплодотворение преимущественно поверхностное, наружное, не всегда защищенное покровами питающего растения. Количество закладываемых органов полового размножения обычно очень большое, в результате чего образуется неисчислимое множество ооспор, например у Sclerospora graminicola в листьях могара, S. secalina в листьях ржи, Plasmopara viticola в листьях винограда.
Но у отдельных представителей этого порядка ооспоры образуются не всегда, в небольшом количестве или совсем отсутствуют. Значение ооспор не только в постоянно происходящих процессах видо- и формообразования, но и для сохранения видов в природе. Ооспоры не менее года пребывают в латентном состоянии в остатках пораженных растений, попавших в почву, и часто не активизируются до полного разложения остатков, после чего под влиянием чередования намачивания, высушивания, нагрева и охлаждения они созревают, выходят из состояния покоя и становятся способны к ферментативной деятельности. Они прорастают затем с образованием ростковой трубки или зооспорангия. Этот процесс прослежен у паразитирующего на винограде вида Plasmopara viticola, но у многих видов еще не установлен.
Семейство Питиевые (Pythiaceae) (Ю. Т. Дьяков)
Питиевые грибы занимают промежуточное положение между водными сапрофитами из семейства сапролегниевых и высокоспециализированными паразитами высших наземных растений из семейства пероноспоровых. Это семейство очень важно для понимания хода эволюции у грибов. На его примере можно наблюдать, каким образом грибы расстались с водной средой и перешли к наземному образу жизни. Поэтому рассмотрение функциональной морфологии этих грибов, их физиологии и экологии представляет большой интерес.
Будучи переходным, это семейство, включающее всего несколько родов, необычайно широко распространено. Питиевые грибы встречаются в морской и пресной воде, в различных почвах и на растениях. Они найдены почти во всех точках земного шара - от Исландии до Южной Австралии, включая тропические зоны Африки, Азии и Америки.
Питиевые - одна из самых представительных групп почвенных грибов. Однако исследовать их истинную распространенность в почве не просто. Они медленно растут на обычных питательных средах и легко вытесняются быстро растущими несовершенными грибами, выделяющими к тому же в окружающую среду антибиотические вещества. Поэтому, если развести почвенный образец в стерильной воде и высеять на обычные для выращивания грибов питательные среды, питиевые грибы обнаружить не удастся.
Для выделения питиевых обычно применяют различные модификации двух методов. Первый метод заключается в добавлении в питательную среду антибиотиков, слабо действующих на питиевые, но подавляющих рост других почвенных грибов (например, полимиксина, пимарицина). Второй метод заключается в использовании ловушек, в которые избирательно переходят питиевые грибы. Такими ловушками могут служить простерилизованные с поверхности плоды различных растений (яблони, груши, огурца), наполовину погруженные во влажные почвенные образцы. Если на искусственных питательных средах питиевые растут медленнее большинства почвенных сапрофитов и вытесняются ими, то на живых растениях или их частях скорость распространения питиевых в связи с их паразитическими свойствами довольно высока. Помещая загнившие выше поверхности почвы части плодов на питательные среды, можно выделить из них питиевые грибы многих видов. Таким образом удалось получить объективную оценку истинного распространения питиевых грибов в почвах, причем по числу изолятов они оказались на одном из первых мест среди почвенных грибов.
Образ жизни питиевых грибов так же разнообразен, как и места их обитания.
Обитающие в водной среде грибы питаются главным образом водорослями. Среди них встречаются как сапрофитные, так и паразитические формы. Питиевые грибы паразитируют на многих видах зеленых водорослей (из класса равножгутиковых, сцеплянок и харовых), красных (Porphyra, Ceramium), сине-зеленых (Tolypothrix). Эти паразиты малоспециализированы. Они могут развиваться в клетках водорослей из различных классов и даже отделов, а при искусственном заражении поражают и высшие растения. Например, Pythium adherens паразитирует на водорослях Rhizoclonium hierogliphicum, Spirogyra crassa, Ulothrix zonatae, Tolypothrix sp. и может заражать кукурузу, горох, помидоры, огурцы. Некоторые водные питиевые грибы встречаются на живых и мертвых беспозвоночных животных (например, на дафнии).
При паразитировании на водорослях мицелий большинства питиевых грибов развивается непосредственно в клетках хозяев, он пронизывает эти клетки и вызывает их гибель (рис. 24). Некоторые виды, однако, воздействуют на свою жертву иначе. Они образуют выросты мицелия - гаустории, которые проникают в клетку хозяина и служат питательным органом. Пораженные клетки дольше остаются живыми, а это выгодно паразиту.
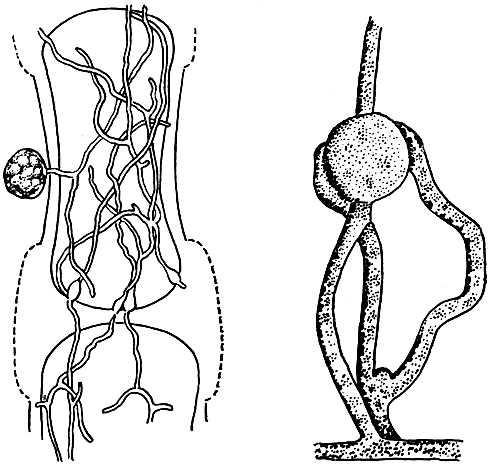
Рис. 24 (слева). Поражение красной водоросли церамиум питиумом (Pythium maritimum): 1 - мицелий внутри клеток водоросли; 2 - освобождение зооспор
Почвообитающие питиевые грибы, так же как и водные, ведут сапрофитный или паразитический образ жизни. Большинство из них поражают подземные органы высших растений. Более примитивные виды могут неопределенно долгое время находиться в почве в сапрофитном состоянии, питаясь растительными остатками, но при наличии в почве корневой системы растений способны ее поражать. При этом питиевые поражают чаще всего молодые растения, корни которых не покрыты еще хорошо развитыми защитными покровами, а также растения, ослабленные неблагоприятными условиями роста. Пораженные корешки отмирают, а надземные части растения отстают в росте и часто также погибают.
Поражение корней питиевыми грибами носит название корнееда или корневой гнили. Корневой гнилью поражаются всходы сахарной свеклы, хлопчатника, люцерны и деревьев (рис. 29,1). Особенно сильно корнеед развивается в годы с холодной и влажной весной, когда корневая система развивается медленно, а отдельные участки корней вследствие недостатка воздуха в переувлажненной почве отмирают. Мертвые клетки не способны к активной физиологической защите и легко заселяются грибами, служа воротами инфекции. Поселившись на отмерших участках корней, паразит питается там и выделяет токсические вещества, которые убивают прилегающие к мертвым живые участки. Таким образом осуществляется продвижение паразита по ткани хозяина. Подобные виды питиевых грибов, так же как и паразиты водорослей, широко специализированы и могут заражать десятки и сотни видов высших растений из разных родов и семейств.
У других видов питиевых паразитические свойства еще более развиты. В отсутствие растений-хозяев они могут находиться в почве лишь в покоящемся состоянии, ибо вегетативный мицелий не выдерживает конкуренции с сапрофитными почвенными грибами и быстро погибает. Некоторые из них поражают не только корневую систему, но и надземные части растений. Это высокоспециализированные паразиты высших растений. Для заражения такие грибы уже не нуждаются в участках отмерших тканей, а питаются лишь живыми клетками хозяина. Поэтому их мицелий развивается внутри тканей по межклетникам, а в клетках находятся лишь выросты мицелия - гаустории, служащие для питания. Зараженные клетки долго остаются жизнеспособными.
Циклы развития и морфологические особенности питиевых грибов отражают образ их жизни. Вегетативный мицелий одет целлюлозной оболочкой, содержит много ядер и способен к неограниченному росту в питательном субстрате, будь то почва или ткани растения-хозяина. На мицелии образуются органы бесполого и полового размножения. Первые представлены зооспорангиями, в которых развиваются зооспоры. Зооспорангии водных и многих обитающих в почве питиевых представляют собой концы недифференцированных гиф, отделенные от остального мицелия перегородкой. У одних грибов (Pythium dissotocum, P. monospermum) зооспорангии, как и у сапролегниевых, нитевидные; у других (P. debaryanum и фитофтора) зооспорангии округлые или лимоновидные. Паразитические питиевые грибы, мицелий которых развивается внутри тканей хозяина, для распространения зооспор должны иметь особые выросты мицелия - зооспорангиеносцы, выносящие зооспорангии на поверхность субстрата.
Способ прорастания зооспорангиев зависит прежде всего от образа жизни. У всех водных и большинства почвенных грибов оболочка на вершине или сбоку зооспорангия разрывается и его содержимое выходит наружу в виде пузыря, в котором протоплазма разделяется на отдельные участки, превращающиеся в зооспоры. Оболочка зооспорангия при этом остается на мицелии. Такой способ прорастания связан с тем, что выходящие из зооспорангия зооспоры сразу попадают в благоприятные для них условия - в водную среду, в которой они могут активно двигаться и прорастать. У видов, поражающих надземные части растений, зооспорангии формируются на поверхности растений, т. е. в условиях быстрой смены увлажнения и высыхания. Зооспоры, представляющие собой комочки протоплазмы без оболочек, не способны даже короткое время находиться вне капель воды. Поэтому при описанном выше способе прорастания был бы большой риск гибели вышедших из зооспорангиев зооспор в связи с подсыханием листьев.
Прорастание зооспорангиев у подобных видов разделено на два этапа. Сначала зооспорангии в целом виде отделяются от спорангиеносцев. Они имеют плотные оболочки и способны сохранять жизнеспособность и вне капель воды. Зооспорангии разносятся ветром и дождевыми брызгами. Поэтому они способствуют распространению гриба в пространстве (у водных и почвообитающих видов эту функцию несут активно плавающие зооспоры). Выход зооспор из зооспорангиев возможен только в каплях воды и при пониженной температуре, т. е. в условиях, гарантирующих медленное высыхание капель. Вышедшие из зооспорангиев зооспоры движутся непродолжительное время (от нескольких минут до нескольких часов) и прорастают. Если зооспорангии проросли в каплях на поверхности восприимчивых растений, ростки зооспор внедряются в растительные ткани, в иных случаях проросшие зооспоры погибают.
При повышенной температуре (больше 20° С) капли могут быстро высыхать, поэтому у некоторых видов питиевых грибов в процессе эволюции возникла способность к прорастанию отделившихся от зооспорангиеносцев зооспорангиев в таких условиях непосредственно ростковой трубкой, которая внедряется в растительные ткани. Таким образом, в семействе питиевых в зависимости от условий обитания можно наблюдать все варианты бесполого размножения, от типичных зооспорангиев, характерных для водорослей и водных грибов, до конидий, характерных для наземных высших грибов.
После выхода из зооспорангия зооспоры претерпевают три этапа - движение, инцистирование и прорастание.
Движение обеспечивают два жгутика. Обычно зооспоры пассивно движутся с током воды. Однако у многих видов, паразитирующих на корнях высших растений (Pythium aphanidermatum, Phytophthora fragariae, P. parasitica и др.), обнаружено активное движение в направлении корней. Особенно сильно зооспоры привлекаются пораненными участками корней (рис. 26). Известно, что именно такие участки служат воротами инфекции, поэтому движение в их направлении позволяет зооспорам эффективнее осуществлять заражение своих хозяев.
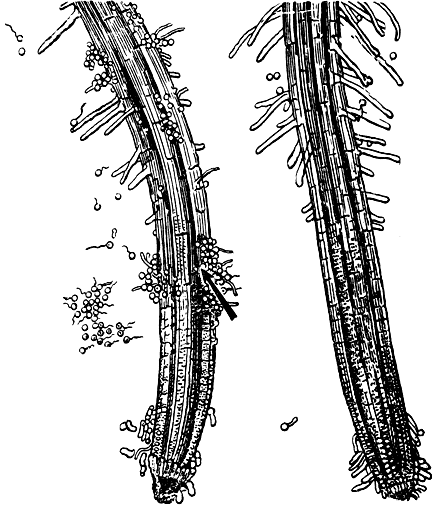
Рис. 26. Привлекающее действие пораненных участков корней для зооспор питиума (Pythium aphanidermatum). Стрелкой указано пораненное место. Справа - непораженный кончик корня
Удалось установить причины привлекающего действия корней. Например, зооспоры P. palmivora активно двигаются в направлении корней кокосовой пальмы. В экстрактах кожуры найден ряд аминокислот, которые, как и корни, привлекают паразита. Поскольку при поранении выделение химических веществ в окружающую среду усиливается, становится понятной причина привлечения зооспор к пораненным участкам корня.
Помимо химических, зооспоры питиевых грибов могут привлечь и физические факторы. Когда зооспоры P. parasitica помещали в камеры с электродами, наблюдали скопление зооспор у катода. Если электроды заменяли корешками, зооспоры скапливались у корешков. Поскольку корни выделяют слабые токи, возможно, движение по направлению к корням обусловлено электротаксисом, который обнаружен у нескольких видов питиевых грибов.
Значение таксисов для этих грибов, однако, не очень велико. Без помощи токов воды зооспоры могут пройти лишь очень ограниченное расстояние. Например, скорость хемотаксического движения зооспор Pythium aphanidermatum составляет около 2,5 мм в минуту. В увлажненной почве, помещенной в чашки Петри, зооспоры Phytophthora cinnamomi достигали кончиков корней, удаленных от них не больше 7 см.
После периода движения зооспоры теряют жгутики, округляются и одеваются тонкой оболочкой - инцистируются. Вслед за инцистированием начинается прорастание зооспор ростковой трубочкой.
Органы полового размножения образованы выростами мицелия. Женские органы (оогонии) - шарообразные выросты, а мужские (антеридии) - нитевидные (рис. 25). Кончик антеридия прикладывается к оогонию, их оболочки в месте соприкосновения растворяются, и содержимое антеридия переливается в оогоний. После слияния двух ядер образуется диплоидная ооспора. Она имеет толстую оболочку, много питательных веществ и способна долго сохраняться в неблагоприятных условиях. У некоторых видов питиума установлено, что ооспоры сохраняют жизнеспособность в воздушно-сухой почве больше 12 лет. Прорастают ооспоры зооспорангием или ростковой трубкой.
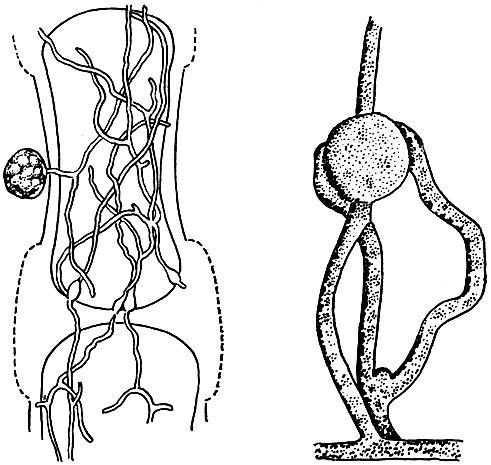
Рис. 25 (справа). Оогонии и антеридии питиума (Pythium fabae)
Многие питиевые грибы гомоталличны, т. е. на одном и том же мицелии образуются как антеридии, так и оогонии. Однако встречаются и гетероталличные виды, у которых для образования половых органов необходим контакт мицелиев разных штаммов. У гетероталличных видов выделяют два изолята - А1 и А2. Ооспоры образуются лишь при совместном росте изолятов А1 и А2. В месте контакта мицелиев кончик гифы одного изолята закручивается и утолщается, давая начало образованию антеридия. Контактирующая с антеридием гифа другого изолята начинает прорастать через него, после чего над антеридием образуется сферическое тело - оогоний. Антеридий у таких видов имеет форму воротничка, окружающего шейку оогония.
Изоляты разных типов спаривания А1 и А2 нельзя назвать мужским и женским. Один и тот же штамм А1 при встрече с одними штаммами А2 образует антеридии, т. е. обладает мужским полом, а при встрече с другими может образовывать оогонии, становясь изолятом женского пола. Следовательно, гетероталличные питиевые грибы потенциально обоеполы, их раздельнополость относительна. Контакт гиф разных типов спаривания лишь стимулирует мицелии к образованию половых органов. Если между мицелиями грибов, относящихся к разным типам спаривания, поместить целлофан, предотвращающий непосредственный контакт между гифами, но позволяющий обмениваться продуктами обмена веществ, гетероталличные изоляты могут превратиться в гомоталличные, т. е. на одном и том же мицелии возникнут антеридии и оогонии, а в дальнейшем и зрелые ооспоры. Следовательно, толчок к образованию половых органов у гетероталличных видов дают химические вещества, проходящие через целлофан.
В семействе питиевых различают несколько родов.
Представители рода зоофагус (Zoophagus) имеют нитевидные зооспорангии, отделенные от несущей их гифы перегородкой. Они паразитируют на коловратках и имеют на мицелии специальные короткие разветвления, приспособленные для захватывания коловраток (рис. 27, 1). В свободном виде они встречаются в воде между нитями водорослей. У грибов из рода питиогетон (Pythiogeton) зооспоры формируются в виде недифференцированной массы в длинном пузыре, выходящем из зооспорангия, а ооспоры одеты очень толстой оболочкой. Развиваются они главным образом на погруженных в воду ветках и плодах (рис. 27, 2).
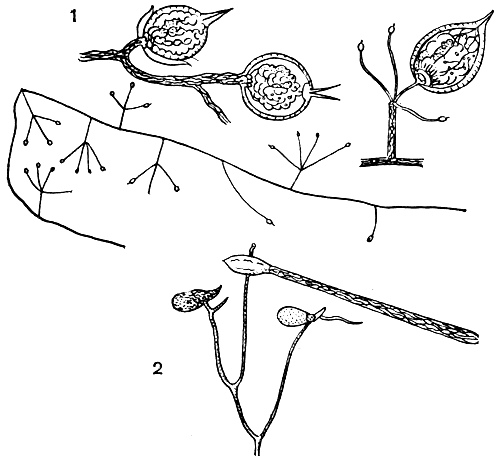
Рис. 27. 1 - мицелий зоофагуса (Zoophagus tentaclum) с ветвями, пронизывающими коловраток; 2 - спороношение питиогетона (Pythiogeton transversum)
Благодаря видовому богатству, широте распространения и практическому значению наибольший интерес представляют грибы из родов питиум (Pythium) и фитофтора (Phytophthora).
Представители рода питиум имеют тонкий, паутинистый мицелий (толщина гиф 3-6 мкм), простирающийся по пищевому субстрату. Большинство водных питиумов обитает в пресной воде, однако Pythium marinum, P. maritimum (рис. 24) и P. reptans встречаются на живых и мертвых морских красных водорослях Сеramium, Porphyra, Bangia.
Pythium marinum живет как паразит и сапрофит морских красных водорослей Ceramium, Porphyra. Мицелий этого гриба заражает клетки водорослей с помощью присосок - аппрессориев - и тянется через много клеток. Вытянутые спорангии пробивают клеточную стенку хозяина и протягиваются на короткие расстояния в воде. Зооспоры образуются в пузыре, выходящем из зооспорангия. Заражение разных видов водорослей ростовыми трубками зооспор происходит по-разному. При заражении водоросли Ceramium гриб образует присоски и тонкую "инфекционную" гифу, развивающую большое давление и, как шило, пробивающую клеточную стенку водоросли. С помощью таких инфекционных структур происходит прорыв оболочки и внедрение паразита в клетку. Оболочка водоросли Porphyra, вероятно, прободается легче, поэтому инфекционных структур в данном случае не образуется.
Большинство пресноводных грибов рода питиум паразитирует на зеленых нитчатых водорослях. Наиболее распространены морфологически близкие виды P. gracile и P. tenue. У первого из них оогонии крупнее, чем у второго (16-20 мкм против 7-17 мкм), и одеты более толстой оболочкой.
Антеридии и оогонии у P. gracile всегда образуются на разных гифах, в то время как у P. tenue они могут быть и на одной гифе. Оба вида встречаются в клетках спирогиры, где они образуют разветвленный мицелий с обильными половыми органами и ооспорами (рис. 28).
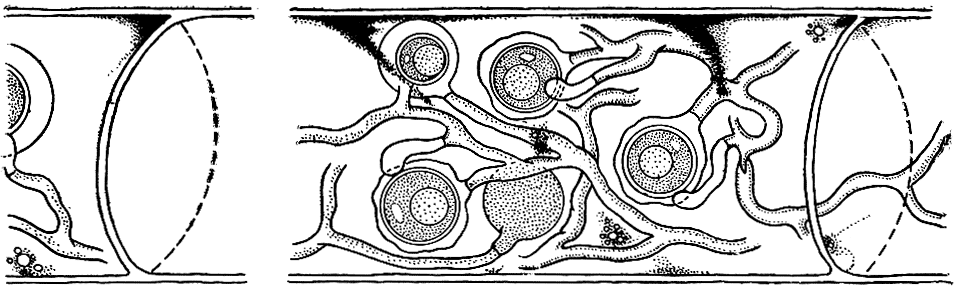
Рис. 28. Мицелий и половые органы питиума (Pythium gracile) в клетках зеленой водоросли спирогиры
Кроме спирогиры, грибы из рода Pythium паразитируют на водорослях Rhizoclonium, Cladophora, Vaucheria, Sphaeroplaea, Chara, Nitella, Chlorococcum и др.
Некоторые виды (например, P. daphnidarum) поражают мелких ракообразных.
Обитающие в почве питиумы поражают корни наземных растений, вызывая корневые гнили. Несколько видов